
Resumen
En este trabajo se realizó un análisis detallado del material faunístico recobrado de dos ocalidades en la Península de Samaná, específicamente, el Abrigo de Daniel y la Cueva Funeraria de Daniel. La fauna identificada, especialmente en la Cueva Funeraria de Daniel, incluye representantes de todos los grupos de mamíferos endémicos (no voladores) conocidos de La Española, incluyendo primates, solenodontes y múltiples especies de roedores caviomorfos, además de tortugas terrestres e iguanas rinoceronte, entre otros. Entre los mamíferos y reptiles extintos se destacan los perezosos Parocnus serus, Neocnus spp., los roedores capromíino Hexolobodon phenax, Plagiodontia araeum e Isolobodon spp., el roedor heptaxodóntido Quemisia gravis, el primate Antillothrix bernensis y la tortuga terrestre Chelonoidis marcanoi. Los especímenes identificados como Quemisia gravis aportan nueva información sobre la morfología craneal y postcraneal de esta especie. Los húmeros y fémures atribuidos a Quemisia muestran caracteres únicos que sugieren capacidades locomotoras diferentes de otros ca- viomorfos de La Española. Mientras, su morfología craneal confirma que Quemisia es un heptaxodóntido, relacionado a Elasmodontomys obliquus de Puerto Rico y Amblyrhiza inundata de las islas Anguila, San Martín y San Bartolomé. Similarmente, los especímenes identificados como Antillothrix bernensis proporcionan nuevos datos sobre su morfología postcraneal y confirman la presencia de este taxón en la región.
Mientras que la fauna identificada del Abrigo de Daniel representa especies que todavía se encuentran en la zona, la fauna de la Cueva Funeraria de Daniel se destaca particularmente por la abundancia del roedor extinto Hexolobodon phenax en la mayoría de los horizontes. Esto, junto con la presencia coetánea de vertebrados más grandes(perezosos, tortugas, iguanas rinocerontes) y la ausencia o rareza de mamíferos más pequeños, aves y reptiles, tiene implicaciones interesantes relacionadas al proceso de acumulación de huesos en la cueva.
Introducción
Las Antillas Mayores forman parte del punto crítico de biodiversidad del Caribe, y como tal, tienen una flora y fauna extraordinariamente diversa que están íntimamente ligadas a su historia geológica y geográfica. La fauna de vertebrados terrestres actual está compuesta principalmente por aves, anfibios y reptiles, y en menor medida por mamíferos. Sin embargo, a lo largo del Cuaternario, esta fauna fue mucho más rica, con múltiples especies endémicas adicionales que se extinguieron debido a causas climáticas o antropogénicas (Pregill &Olson, 1981; MacPhee & Grimaldi, 1996; MacPhee & Flemming, 1999; Steadman et al., 2005; Soto-Centeno & Steadman, 2015; Cooke et al,2017; Upham, 2017; Viñola-López et al., 2022a). Algunos taxones, como los perezosos, roedores caviomorfos, monos platirrinos y solenodontes inclusos representan linajes endémicos con una larga historia en las islas, algunos habiendo llegado a la región durante el Oligoceno y Mioceno, si no antes (Roca et al., 2004; Velez-Juarbe et al., 2014; Delsuc et al., 2019; Presslee et al., 2019; Marivaux et al., 2020; Viñola-López et al., 2022a, 2022b). La mayoría de las Antillas Mayores sufrieron grandes pérdidas de sus mamíferos endémicos, con algunas islas perdiendo hasta el 100% de los mamíferos no voladores durante los últimos milenios (MacPhee & Flemming, 1999; Steadman et al., 2005; Cooke et al, 2017; Upham, 2017; Viñola-López et al., 2022a). La isla de La Española perdió múltiples especies de mamíferos endémicos, así como reptiles y aves, algunos de los cuales sobrevivieron hasta la ocupación humana de la isla (e.g., Miller, 1922, 1929a, 1929b; Etherigde, 1965; Olson, 1974, 1976a; Rímoli, 1977; Pregill & Olson, 1981; Franz & Woods,1983; Woods, 1989; MacPhee & Flemming, 1999; Rega et al., 2002; Steadman et al., 2005; Franz & Franz, 2009; Steadman & Takano, 2013; Soto-Centeno & Steadman, 2015; Cooke et al, 2017; Turvey et al., 2017; Upham, 2017; Albury et al., 2018; Oswald et al., 2021; Viñola-López &Almonte, 2022; Viñola-López et al., 2022a).
Muchos de los animales endémicos extintos de La Española fueron descritos durante la primera mitad del siglo pasado, generalmente recuperados de cuevas y refugios rocosos, y ocasionalmente encontrados en un contexto arqueológico (e.g., Miller, 1922, 1929a, 1929b; Wetmore, 1922b). En años más recientes, nuevo material así como la revisión del material colectado a principios del siglo pasado ha llevado al descubrimiento y a nuevas perspectivas sobre la fauna cuaternaria de La Española (e.g., Cooke et al., 2011; Rosenberger et al., 2011; Turvey et al., 2017; Albury et al., 2018; Oswald et al., 2021; Viñola-López &Almonte, 2022; Viñola-López et al., 2022a). La presencia de algunas de estas especies extintas en asociación con humanos sugiere causas antropogénicas que llevaron a su extinción y también pueden proporcionar información adicional sobre su distribución a lo largo del tiempo y espacio. Aunque algunas de las especies fueron descritas a principios de los 1900s (e.g. Miller, 1922, 1929a), aún quedan múltiples aspectos de su morfología, relaciones filogenéticas y distribución geográfica en la isla por elucidar. A continuación se presenta un resumen de los mamíferos y reptiles recuperados de dos sitios, el Abrigo de Daniel y la Cueva Funeraria de Daniel en la península de Samaná, ubicada en la parte nororiental de la República Dominicana. Aparte de algún material descrito por Miller (1929b) y Johnson (1948), se sabe poco sobre la fauna representada en los depósitos de cuevas y abrigos rocosos en esta región. Con este fin, algunos de los registros descritos a continuación representan nueva información morfológica y de distribución que mejora aún más nuestra entendimiento de los vertebrados terrestres cuaternarios de La Española.
Abreviaciones—AD, Abrigo de Daniel; CFD, Cueva Funeraria de Daniel; CLV, Colección Lázaro Viñola; dP4, cuarto premolar deciduo superior; dp4, cuarto premolar deciduo inferior; M1-3, molares superiores primero al tercero; m1-3, molares inferiores primero al tercero; LACM, Colecciones de Herpetología y Mastozoología, Museo de Historia Natural del Condado de Los Ángeles, Los Angeles, California; P3-4, tercer y cuarto premolar superior; S-AD-#, Samaná, Abrigo de Daniel (detalles adicionales en el Apéndice 4); S-CFD-#, Samaná, Cueva Funeraria de Daniel (detalles adicionales en el Apéndice 4); UF, Colección de Paleontología de Vertebrados, Museo de Historia Natural de Florida, Gainesville, Florida; UPRMP, Colección de Paleontología, Departamento de Geología, Universidad de Puerto Rico, Mayagüez, Puerto Rico.
SYSTEMÁTICA
REPTILIA Laurenti, 1768
SQUAMATA Oppel, 1811
DACTYLOIDAE Fitzinger, 1843
ANOLIS Daudin, 1802
ANOLIS spp.
(Figura 1A-1K; Tabla 2-1)
Material—Dentario derecho (S-AD-001); dentario derecho (S-AD-002); dentario derecho (S-CFD-016); dentario izquierdo y fémur derecho (S-CFD-105); dentario derecho (S-CFD-025); tres fémures izquierdos, una tibia derecha (S-CFD-071); dos dentarios derechos(S-CFD-038); tres dentarios izquierdos y uno derecho (S-CFD-112); dentario derecho, un fémur parcial izquierdo y uno derecho (S-CFD-140); un fémur derecho, un fémur parcial izquierdo, y húmero marcial derecho, un dentario parcial izquierdo, un dentario derecho, dos maxilares parciales (S-CFD-145).
Localidad y Horizontes—El material descrito proviene de las unidades UE-2 y UE-3 en el Abrigo de Daniel; y de las unidades UE-6, UE-8, UE-9, UE-18 y UE-19 en la Cueva Funeraria de Daniel.
Observaciones—Los dentarios tienen dientes pleurodontes ligeramente aplanados bucolingualmente, con los dientes más posteriores siendo tricúspides con una cúspide central grande, mientras que anteriormente los dientes son más pequeños y con una sola cúspide. Algunos de los dentarios de la Cueva Funeraria de Daniel (e.g. S-CFD-016) presentan surcos y rugosidades a lo largo de la superficie bucal. Los dentarios de la unidad UE-9 tienen dientes relativamente pequeños, tricúspides, sin coronas expandidas que están aplanados bucolingualmente. El espécimen más pequeño de esa unidad (S-CFD-038) tiene un contorno más curvilíneo del borde lingual de la repisa dental, siendo muy similar a Anolis evermanni de Puerto Rico (Pregill, 1981), en contraste con los más grandes (S-CFD-038, S-CFD-112), que tienen un borde más recto de la repisa dental.
La morfología general de los fémures y la tibia es consistente con la observada en otros anoles (e.g., Anolis equestris; LACM 163705).
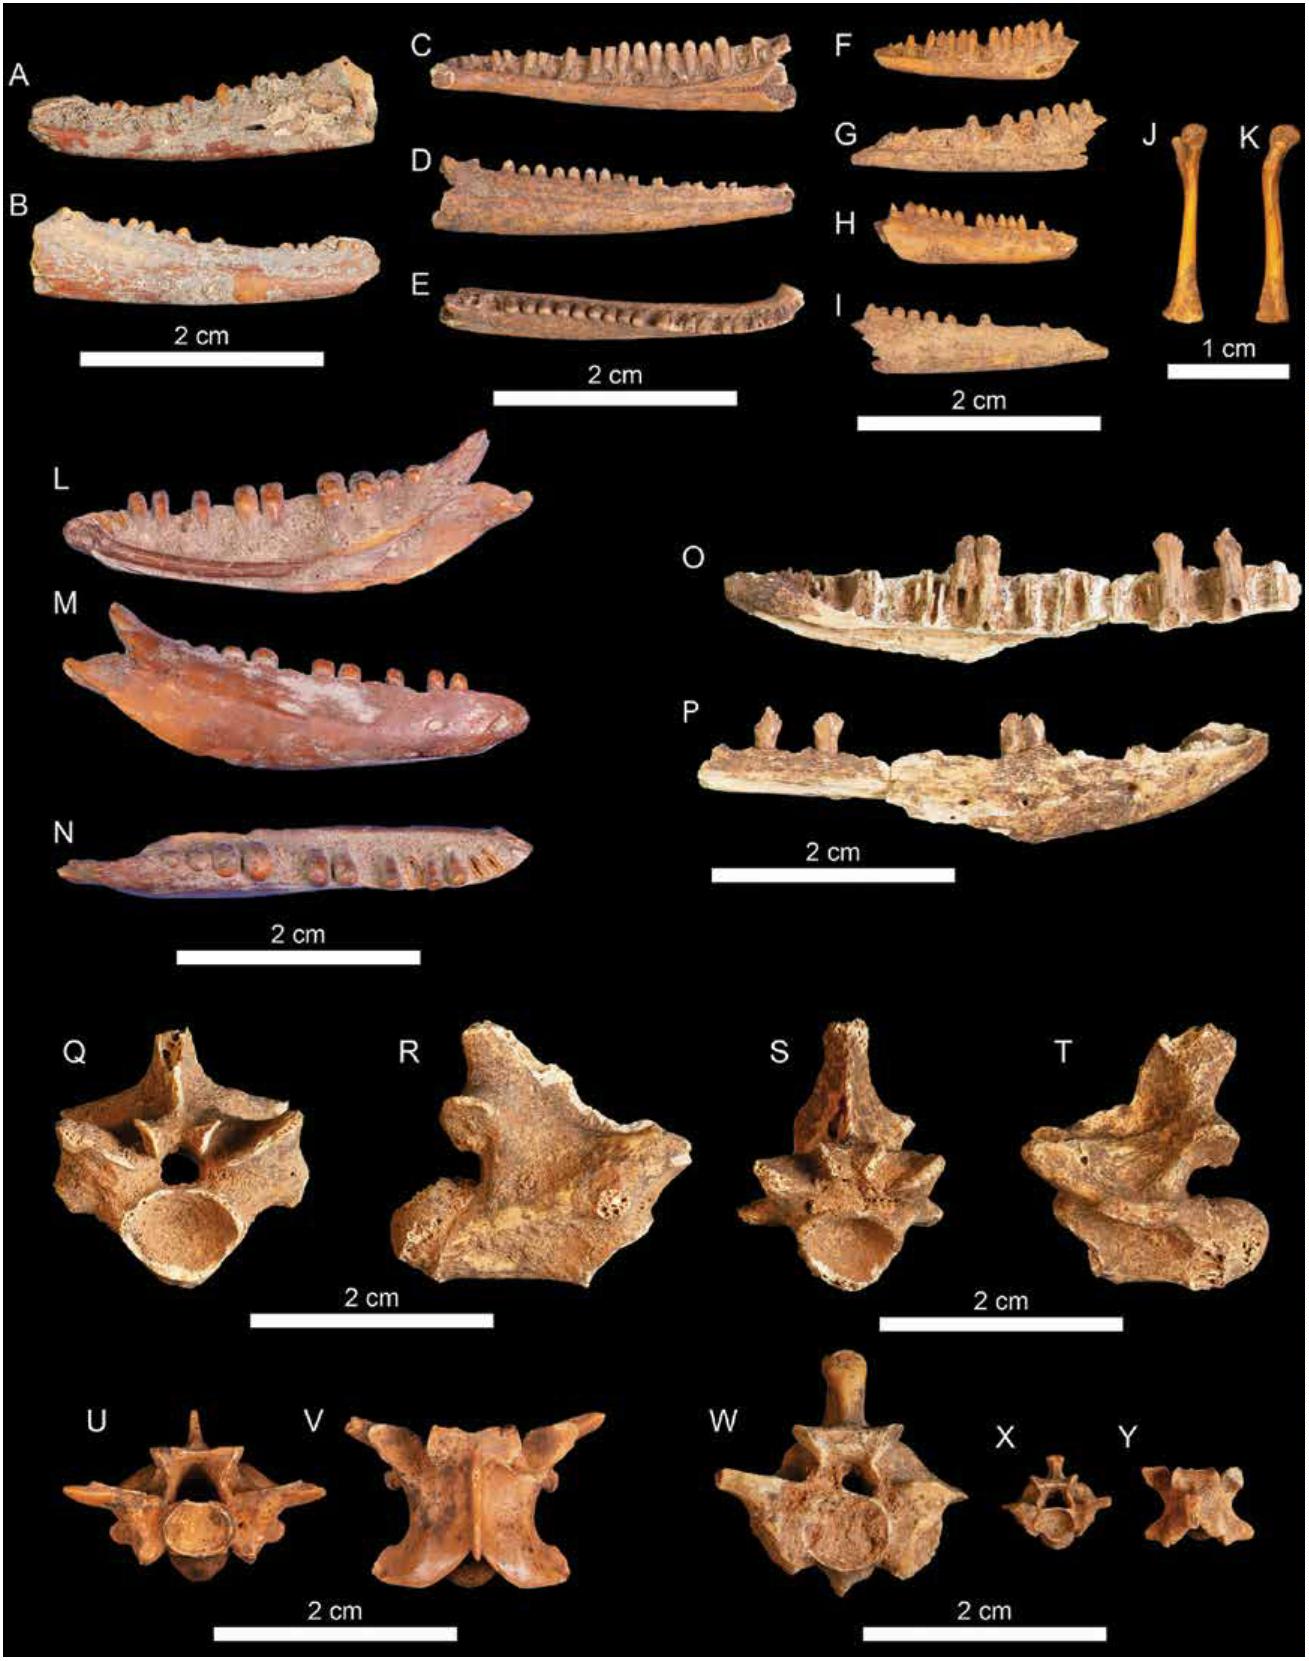
Figura 1. Samana Fauna-herps
Los fémures son pequeños, con longitudes máximas entre 14-17 mm. Proximalmente, la cabeza del fémur está angulada proximodistalmente en relación al eje largo del hueso. El trocánter interno está bien desarrollado y separado de la cabeza del fémur por una muesca comparativamente profunda; los extremos distales no están preservados, pero probablemente eran más anchos transversalmente que dorsoventralmente. La tibia carece del extremo proximal; distalmente es amplia anteroposteriormente y está rotada relativo al axis del hueso. En general, los anoles del Abrigo de Daniel y la Cueva Funeraria de Daniel representan múltiples taxones dado a sus diferencias de tamaño y morfológico, pero sin trabajos osteológicos adicionales sería difícil asignarlos a especies específicas.
DIPLOGLOSSIDAE Cope, 1865
CELESTINAE School and Hedges, 2021
COMPTUS School and Hedges, 2021
COMPTUS STENURUS (Cope, 1863)
COMPTUS cf. C. STENURUS
(Figura 1L-1N; Tabla 2-1)
Material—Dentario derecho (S-AD-003).
Localidad y Horizontes—Encontrado solamente en la unidad UE-3, Área 3, Abrigo de Daniel, Samaná.
Observaciones—La mayoría de los caracteres concuerdan con Diploglossus (sensu lato), incluyendo la presencia de un surco meckeliano ampliamente abierto, dientes con estrías y una espina surangular con un borde posteroventral libre (ver Bochaton et al., 2016; Syromyatnikova & Arana, 2023). La presencia de dientes más romos hacia la parte posterior de la hilera dental se parece a fósiles de Diploglossus de Guadalupe (Bochaton et al., 2016). Etheridge (1965) reporta fósiles de Comptus stenurus y Panolopus costatus (ambos anteriormente clasificados como Diploglossus ó Celestus; Hedges et al., 2019; Schools & Hedges, 2021) de Cerro de San Francisco, cerca de la frontera con Haití. El género Diploglossus ha sido revisado exhaustivamente a lo largo de los años, resultando primero en la reasignación de Diploglossus stenurus y Diploglossus costatus a Celestus, como C. stenurus y C. costatus (Hedges et al., 2019), y más recientemente separados aún más como Comptus stenurus and Panolopus costatus (Schools & Hedges, 2021).
Actualmente en la región de Samaná se conocen tres especies: Comptus stenurus, Panolopus costatus, y Sauresia sepsoides. Etheridge (1965)estimó una longitud hocico-cloaca de entre 210-250 mm para el material que asignó a C. stenurus. Sin embargo, dado a que la longitud máxima conocida para C. stenurus es 180 mm, Schwartz (1970) reasignó el material fósil de Etheridge (1965) a Caribicus warreni (previamente en Diploglossus/Celestus; Hedges et al., 2019; Schools and Hedges, 2021).
IGUANIDAE Oppel, 1811
CYCLURA Harlan, 1825
CYCLURA CORNUTA (Bonnaterre, 1789)
(Figura 1O-1T; Tablas 2-2, 2-3)
Material—Dentario derecho parcial (S-CFD-017); seis vértebras torácicas y una caudal (S-CFD-057); ilion derecho parcial (S-CFD-014); dentario derecho parcial (S-CFD-031); pelvis derecha parcial(S-CFD-50); pelvis izquierda, cinco vértebras torácicas y dos caudales(S-CFD-073); dos vértebras torácicas posteriores y una caudal (S-CFD-113); una vértebra torácica posterior, una vértebra caudal anterior y una vértebra caudal posterior (S-CFD-126); cinco vértebras torácicas y una caudal (S-CFD-142).
Localidad y Horizontes—Encontrado en las unidades UE-6, UE-8, UE-9, UE-17 y UE-18 en la Cueva Funeraria de Daniel, Samaná.
Observaciones—Los dentarios se distinguen por tener dientes con coronas comprimida bucolingualmente y en forma de abanico. Las coronas son multicúspides, con una cúspide central grandis y dos a tres cúspides más pequeñas distales y mesiales, las coronas están orientadas oblicuamente, de modo que hay un ligero solapamiento entre los dientes adyacentes. Los caracteres dentales son similares a los reportados para otras especies de Cyclura (ver Pregill, 1981).
Las vértebras son más grandes de lo que se esperaría en otros reptiles(además de los testudínidos y serpientes) conocidos en cualquiera de las unidades de la Cueva Funeraria de Daniel. Las vértebras torácicas se distinguen por las sinapófisis para la articulación de las costillas, que están ausentes en las vértebras caudales. Las vértebras torácicas anteriores tienen superficies articulares para las costillas más robustas y ensanchadas dorsoventralmente, en contraste con las vértebras torácicas más posteriores, en las cuales estos procesos están reducidos y tienen forma de perilla. Los cotilos y cóndilos tienen forma ovalada a redondeada. Los cotilos tienen su borde dorsal extendiéndose más cranealmente que sus bordes ventrales, dando a la superficie articular una orientación anteroventral. Las vértebras caudales anteriores tienen centros más cortos y procesos transversos más largos, mientras que en las caudales más posteriores la condición se invierte, con centros más largos y procesos transversos más cortos. Los cotilos en las caudales tienen un contorno más subrectangular, y presentan articulación para los cheurones a lo largo de sus superficies posteroventrales. Todas las vértebras tienen zigoesfenos bien separados de la prezigapófisis.
El ilio de la unidad UE-6 y los innominados de las unidades UE-8 y UE-18 coinciden en tamaño y caracteres morfológicos con los de Cyclura cornuta (LACM 163153) más que con los de las especie más pequeña Cyclura ricordi (LACM 163148). De las dos especies vivientes de Cyclura en La Española, los especímenes examinados se comparan mejor con C. cornuta, lo cual también sería más consistente con la distribución actual de la especie.
BOIDAE Gray, 1825
CHILABOTHRUS Duméril & Bibron, 1844
CHILABOTHRUS STRIATUS (FISCHER, 1856)
(Figura 1W-1Y; Tabla 2-4)
Material—Dos vértebras troncales centrales (S-CFD-114); dos vértebras troncales centrales (S-CFD-127).
Localidad y Horizontes—Encontrado en las unidades UE-9 y UE-17 en la Cueva Funeraria de Daniel, Samaná.
Observaciones—Aunque ambas vértebras de la unidad UE-17provienen de individuos de diferentes tamaños, comparten una morfología casi idéntica que concuerda tanto con las características generales de Chilabothrus descritas por Pregill (1981) como con los especímenes de C. striatus examinados (LACM 163332, LACM 163333, LACM 163334). Los cotilos y cóndilos son redondeados. Las superficies pre- y postzigapofisarias son ovaladas transversalmente y casi horizontales; las hipapófisis están reducidas, formando una quilla hipofisaria que se extiende a lo largo de la superficie ventral de las vértebras. Los procesos accesorios en las prezigapófisis son casi inexistentes, diferenciándose notablemente de la condición observada en Haitiophis anomalus (ver abajo). Las espinas neurales son cortas anteroposteriormente y se vuelven más gruesas transversalmente en el ápice, como en Chilabothrus inornatus (Pregill, 1981). Los zigoesfenos están conectados a las prezigapófisis, mientras que la superficie dorsolateral al zigántra está abultado. En vista dorsal, el borde posterior del arco neural está profundamente emarginado, alcanzando la base de la espina neural, asemejándose a la condición observada en C. striatus y C. inornatus(Pregill, 1981).
DIPSADIDAE Bonaparte, 1838
HAITIOPHIS Hedges and Vidal, 2009
HAITIOPHIS ANOMALUS (Peters, 1863)
(Figura 1U-1V; Tabla 2-4)
Material—Vértebra troncal (S-CFD-058); vértebra troncal (S-CFD- 143).
Localidad y Horizontes—Encontrado en las unidades U-9 y UE-18 en la Cueva Funeraria de Daniel, Samaná.
Observaciones—Las vértebras son relativamente grandes, especialmente en comparación con otros dipsádidos antillanos (por ejemplo, Ialtris, Borikenophis), siendo más similares en tamaño a los bóidos (por ejemplo, Chilabothrus). Más allá de la similitud en tamaño, las vértebras de Haitiophis claramente difieren de Chilabothrus en otros aspectos morfológicos en los que concuerdan más con los dipsádidos examinados (por ejemplo, Borikenophis portoricensis, UPRMP 3227; ver también Pregill, 1981). La espina neural es anteroposteriormente larga y no está expandida en su ápice; las facetas prezigapofisarias tienen contornos elípticos, están orientadas anterolateralmente, y poseen procesos accesorios en forma de espina muy largos y orientados lateralmente. El cotilo y el cóndilo tienen contornos redondeados; el cóndilo está ligeramente orientado posterodorsalmente, mientras que el cotilo está ligeramente orientado anteroventralmente. La superficie ventral del centrum tiene una prominente cresta ventral. La articulación de la costilla está formada por una sinapofisis prominente y en forma de perilla. Las postzigapofises tienen un contorno más ovalado y están más orientadas lateralmente. Los zigoesfenos están conectados a las prezigapofises.
TESTUDINES Linnaeus, 1758
TESTUDINIDAE Batsch, 1788
CHELONOIDIS Fitzinger, 1835
CHELONOIDIS sp.
(Figura 2E-2F; Tabla 2-5)
Material—Placa periferal izquierda, placas costales parciales y otros fragmentos de caparazón (S-CFD-059); múltiples fragmentos de caparazón, incluyendo partes de placas costales (S-CFD-074); húmero izquierdo parcial, falange distal del primer dedo izquierdo (S-CFD-128).
Localidad y Horizontes—Encontrado en las unidades UE-6 y UE-17 en la Cueva Funeraria de Daniel, Samaná.
Observaciones—Los especímenes se comparan bien con elementos similares en Chelonoidis niger (LACM 164159) y C. carbonaria (LACM172517, LACM 172520), así como material comparativo de alrededor de las Grandes Antillas (Williams, 1950, 1952; Franz & Franz, 2009; Turvey et al., 2017; Viñola-López & Almonte, 2022). El húmero carece de la epífisis proximal y aproximadamente la mitad distal de la diáfisis. La cicatriz para el músculo latissimus dorsi tiene un contorno ovalado y parecer ser comparativamente poco profunda, su borde posterolateral está bien definido. Una fosa relativamente superficial para el M. latissimus dorsi está presente en otras tortugas antillanas, incluyendo Chelonoidis monensis y C. alburyorum (Williams, 1952; Franz & Franz, 2009; Viñola-López & Almonte, 2022), en contraste con la fosa más profunda en C. cubensis (Williams, 1950) y Chelonoidis marcanoi (= C. dominicensis), y la fosa extremadamente superficial de C. nigra (e.g. LACM 164159).
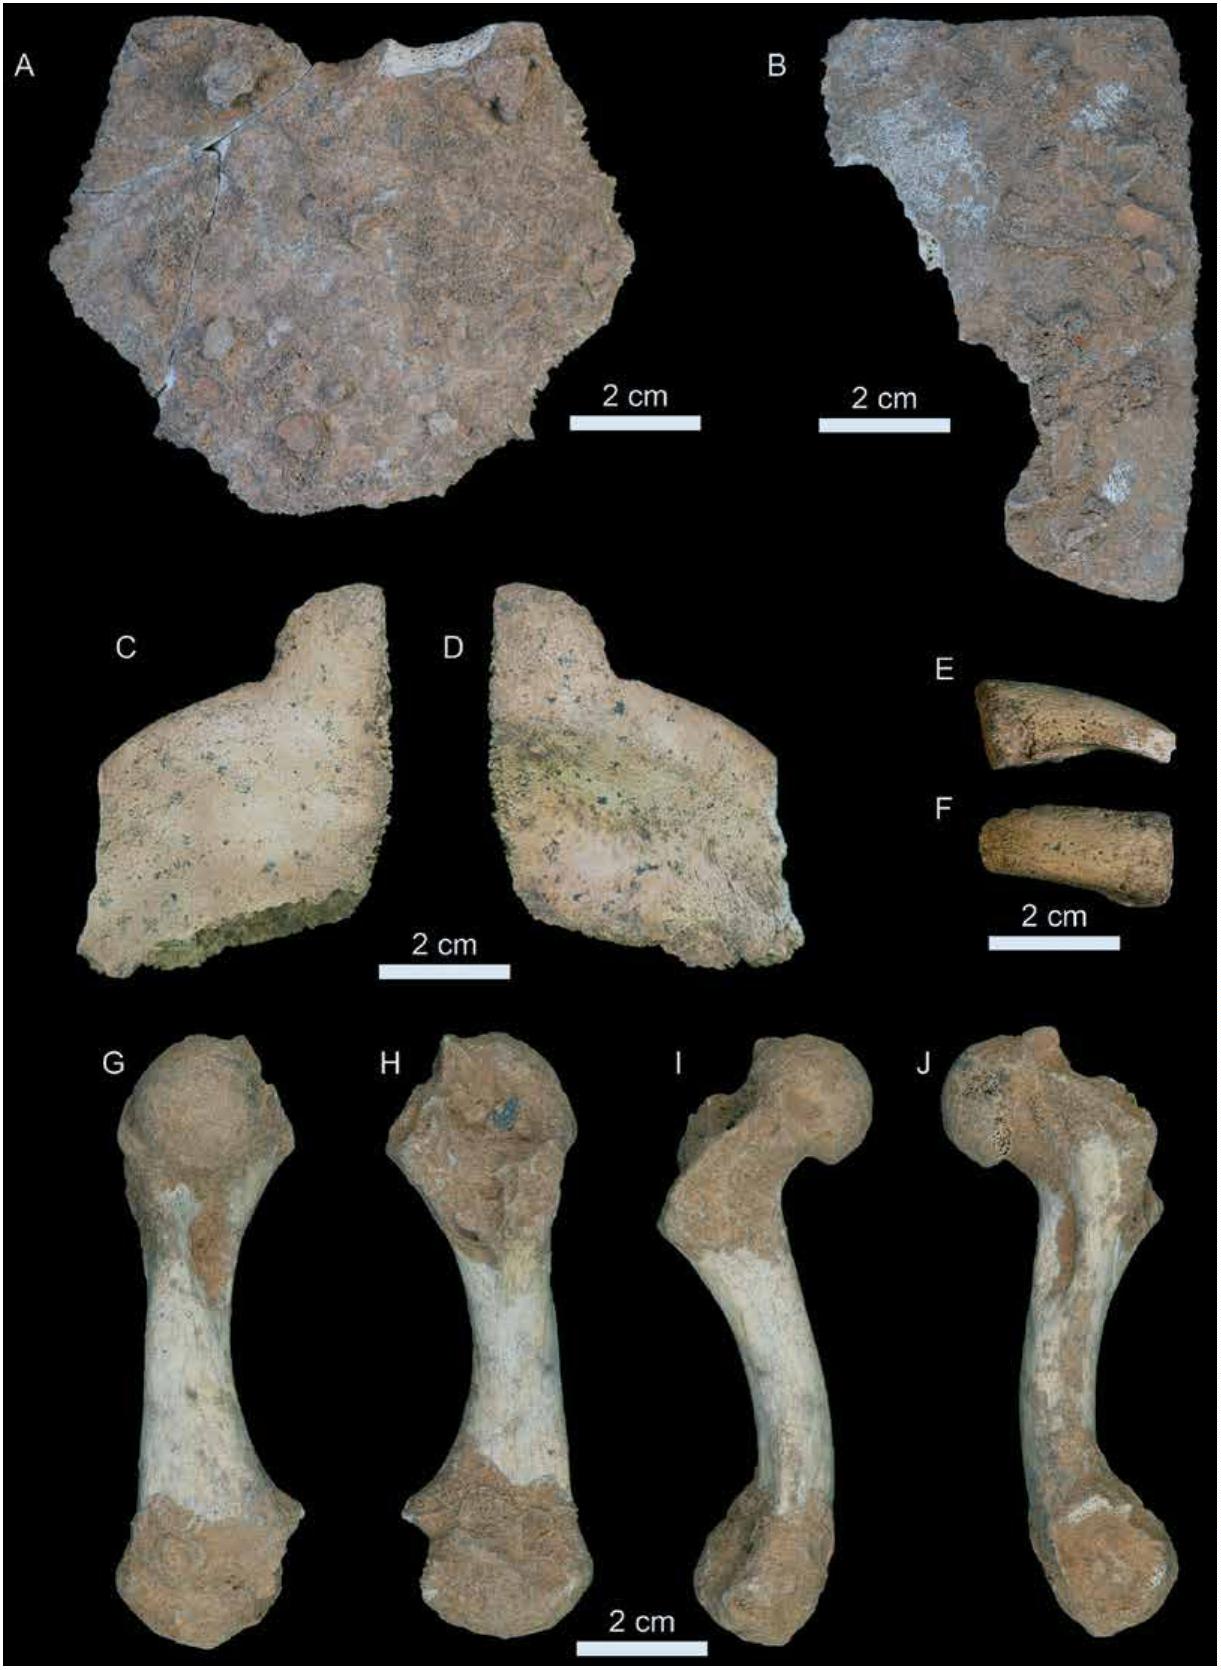
Figura 2. Samana Fauna-Chelonoidis
El falange se compara mejor con el elemento más distal (ungual) del primer falange pedial de Chelonoidis niger (LACM 164159) y C. carbonaria(LACM 172517, LACM 172520). En vista medial o lateral, el falange se estrecha distalmente, con una leve curvatura distoventral. En sección transversal tiene un contorno subtriangular, con la cara lateral casi vertical, formando casi un ángulo de 90º con la superficie ventral. La superficie lateral es plana, lo que la distingue como el primer falange, mientras que la superficie medial continúa con la dorsal formando una superficie ligeramente convexa. La epífisis proximal no está preservada y la superficie es rugosa. Ventralmente hay una rugosidad subcircular que se extiende hasta aproximadamente la mitad del hueso.
CHELONOIDIS MARCANOI Tur vey, Almonte, Hansford, Scofield,
Brocca & Chapman, 2017
(Figura 2A-2D, 2G-2J; Tabla 2-5)
Material—Epiplastrón derecho (S-CFD-026); placas nucal y costal (S-CFD-039); húmero derecho y fragmentos de caparazón (S-CFD-139).
Localidad y Horizontes—Encontrado en las unidades UE-8, UE-9 y UE-18 en la Cueva Funeraria de Daniel, Samaná.
Observaciones—Los especímenes comparten características con otras especies antillanas de Chelonoidis, como el caparazón delgado. La morfología del epiplastrón de la unidad UE-8 es consistente con Chelonoidis marcanoi, teniendo una proyección gular subrectangular, lo cual la distingue de Chelonoidis gersoni, donde la proyección gular tiene un contorno triangular (Viñola-López y Almonte, 2022). De manera similar, el nucal es similar a la morfología de Chelonoidis marcanoi, compartiendo con ese taxón la presencia de una muesca superficial en la parte central del borde anterior (Viñola-López y Almonte, 2022). El nucal tiene un contorno pentagonal, interrumpido a lo largo de su borde anterior por esa muesca, y está notablemente recurveado hacia arriba.
El húmero se asemeja al de la mayoría de las Chelonoidis caribeñas en las que se conoce este elemento (Williams, 1950, 1952; Franz y Franz,2009; Turvey et al., 2017; Viñola-López y Almonte, 2022). Aunque están incompletos, los trocánteres parecen haber sido relativamente rectos proximalmente. La cabeza es esférica y orientada proximodorsalmente. Una fosa ovalada y relativamente profunda y rugosa para el M. latissimus dorsi se encuentra distal a la cabeza, cerca del ladio radial de la diáfisis, similar a la condición observada en Chelonoidis cubensis y C. marcanoi, y en contraste con la cicatriz muscular más superficial observada en C. gersoni (Williams, 1950; Turvey et al., 2017; Viñola-López y Almonte, 2022). La diáfisis es redondeado en sección transversal y curvado dorsalmente, dando al húmero un contorno en forma de S en vista cubital (Figura 2H). El extremo distal está expandido transversalmente y parece haber sido más ancho transversalmente que el extremo proximal. El tamaño está dentro del rango reportado para Chelonoidis marcanoi por Turvey et al. (2017), mientras que la sección transversal redondeada de la diáfisis y la fosa muscular relativamente profunda para M. latissimus dorsi son consistentes con C. marcanoi (Franz y Woods,1983; Turvey et al., 2017; Albury et al., 2018; Viñola-López y Almonte,2022). La presencia de Chlonoidis marcanoi en Sanamá representa una nueva localidad para esta especie.
MAMMALIA Linnaeus, 1758 XENARTHRA Cope, 1889
FOLIVORA Delsuc et al., 2001
PILOSA Flower, 1883
MEGALOCNIDAE Kraglievich, 1923
ACRATOCNUS Anthony, 1916
ACRATOCNUS YE MacPhee, White & Woods, 2000
(Figura 3; Tablas 2-7, 2-8, 2-9, 2-10, 2-11, 2-12)
Material—Un metacarpo II derecho, un metacarpo III derecho, dos falanges (S-CFD-004); un metacarpo III derecho (S-CFD-001); un metacarpo III derecho, cuatro falanges, dos falanges unguales y una vértebra caudal (S-CFD-015); caniniforme inferior derecho (S-CFD-106); extremo proximal de un radio derecho, un falange ungual derecho, un falange ungual parcial, un dígito manual segundo, dos metacarpos II izquierdos, una vértebra caudal (S-CFD-027); molariforme izquierdo inferior (S-CFD-075); dos vértebras caudales anteriores (S-CFD-076); un fragmento de una mandíbula derecha (S-CFD-083); un molariforme superior izquierdo (S-CFD-115); un caniniforme superior derecho, un falange ungual derecho, un falange segundo (S-CFD-040); una ulna izquierda parcial, un radio derecho (en dos partes), una vértebra, una costilla izquierda (S-CFD-041); un falange derecho, dos falanges izquierdos, un falange ungual izquierdo, un metacarpo III izquierdo, un caniniforme inferior izquierdo (S-CFD-088); un astrágalo derecho, un extremo distal de una fíbula izquierda, un primer falange de un dígito manual, un falange ungual parcial, una vértebra caudal (S-CFD-129); un caniniforme superior derecho, un caniniforme inferior izquierdo, un extremo proximal de una ulna derecha, un fragmento de una pelvis derecha, una epífisis proximal de una tibia derecha, un extremo distal de una fíbula derecha, un calcaneo derecho (S-CFD-052); una vértebra caudal (S-CFD-122); dos molariformes (S-CFD-147).
Localidad y Horizontes—Encontrados en las unidades Superficie, UE-6, UE-7, UE-8, UE-9, UE-10, UE-17 y UE-18, en la Cueva Funeraria de Daniel, Samaná.
Observaciones—El molariforme superior izquierdo de la unidad UE-9 tiene un contorno subrectangular y ligeramente más comprimido hacia el lado bucal. La faceta de desgaste mesial es relativamente plana, ligeramente más elevada lingualmente que bucalmente; la esquina distobucal está fracturada. El diente está ligeramente curvado distalmente. El tamaño y la morfología general son consistentes con lo observado en el holotipo de Acratocnus ye (UF 170533). Un fragmento de mandíbula derecha de la unidad UE-8 se refiere tentativamente a Acratocnus ye basado en la presencia de un foramen mandibular externo que se abre en una superficie plana (vs cóncava en Parocnus)y que está alineado con el extremo anterior del tercer molariforme(Silva Taboada et al., 2007). El alveolo del tercer molariforme es más grande que el del segundo, con esquinas mediobucales más angulares y distobucales más redondeadas. El tercer molariforme parece haber estado completamente lingual al proceso coronoide (es decir, no era visible en vista lateral), lo cual se compara bien con la morfología del holotipo (UF 170533; obs. pers., septiembre de 2023). El caniniforme inferior derecho de la unidad UE-7 tiene una faceta de desgaste orientada diagonalmente relativo al eje largo del diente, inclinándose mesialmente. El lado bucal es notablemente convexo, mientras que lingualmente es ligeramente convexo, dando al diente un contorno subtriangular en sección transversal. En vista mesial o distal, el diente está ligeramente curvado bucalmente. El molariforme inferior de la unidad UE-8 es más grande y tiene un contorno más rectangular que los mismos elementos en Neocnus spp. El molariforme está ligeramente recurvado, con la superficie oclusal teniendo crestas a lo largo de sus bordes mesial y distal, divididas por una depresión transversal. La mitad lingual del diente es más estrecha mesiodistalmente que la mitad bucal, y tiene un contorno más redondeado. Los caniniformes inferior y superior de la unidad UE-9 son típicos de Acratocnus, especialmente el caniniforme superior que tiene una sección transversal marcadamente triangular y una prominente cresta anterior (bucal/labial).
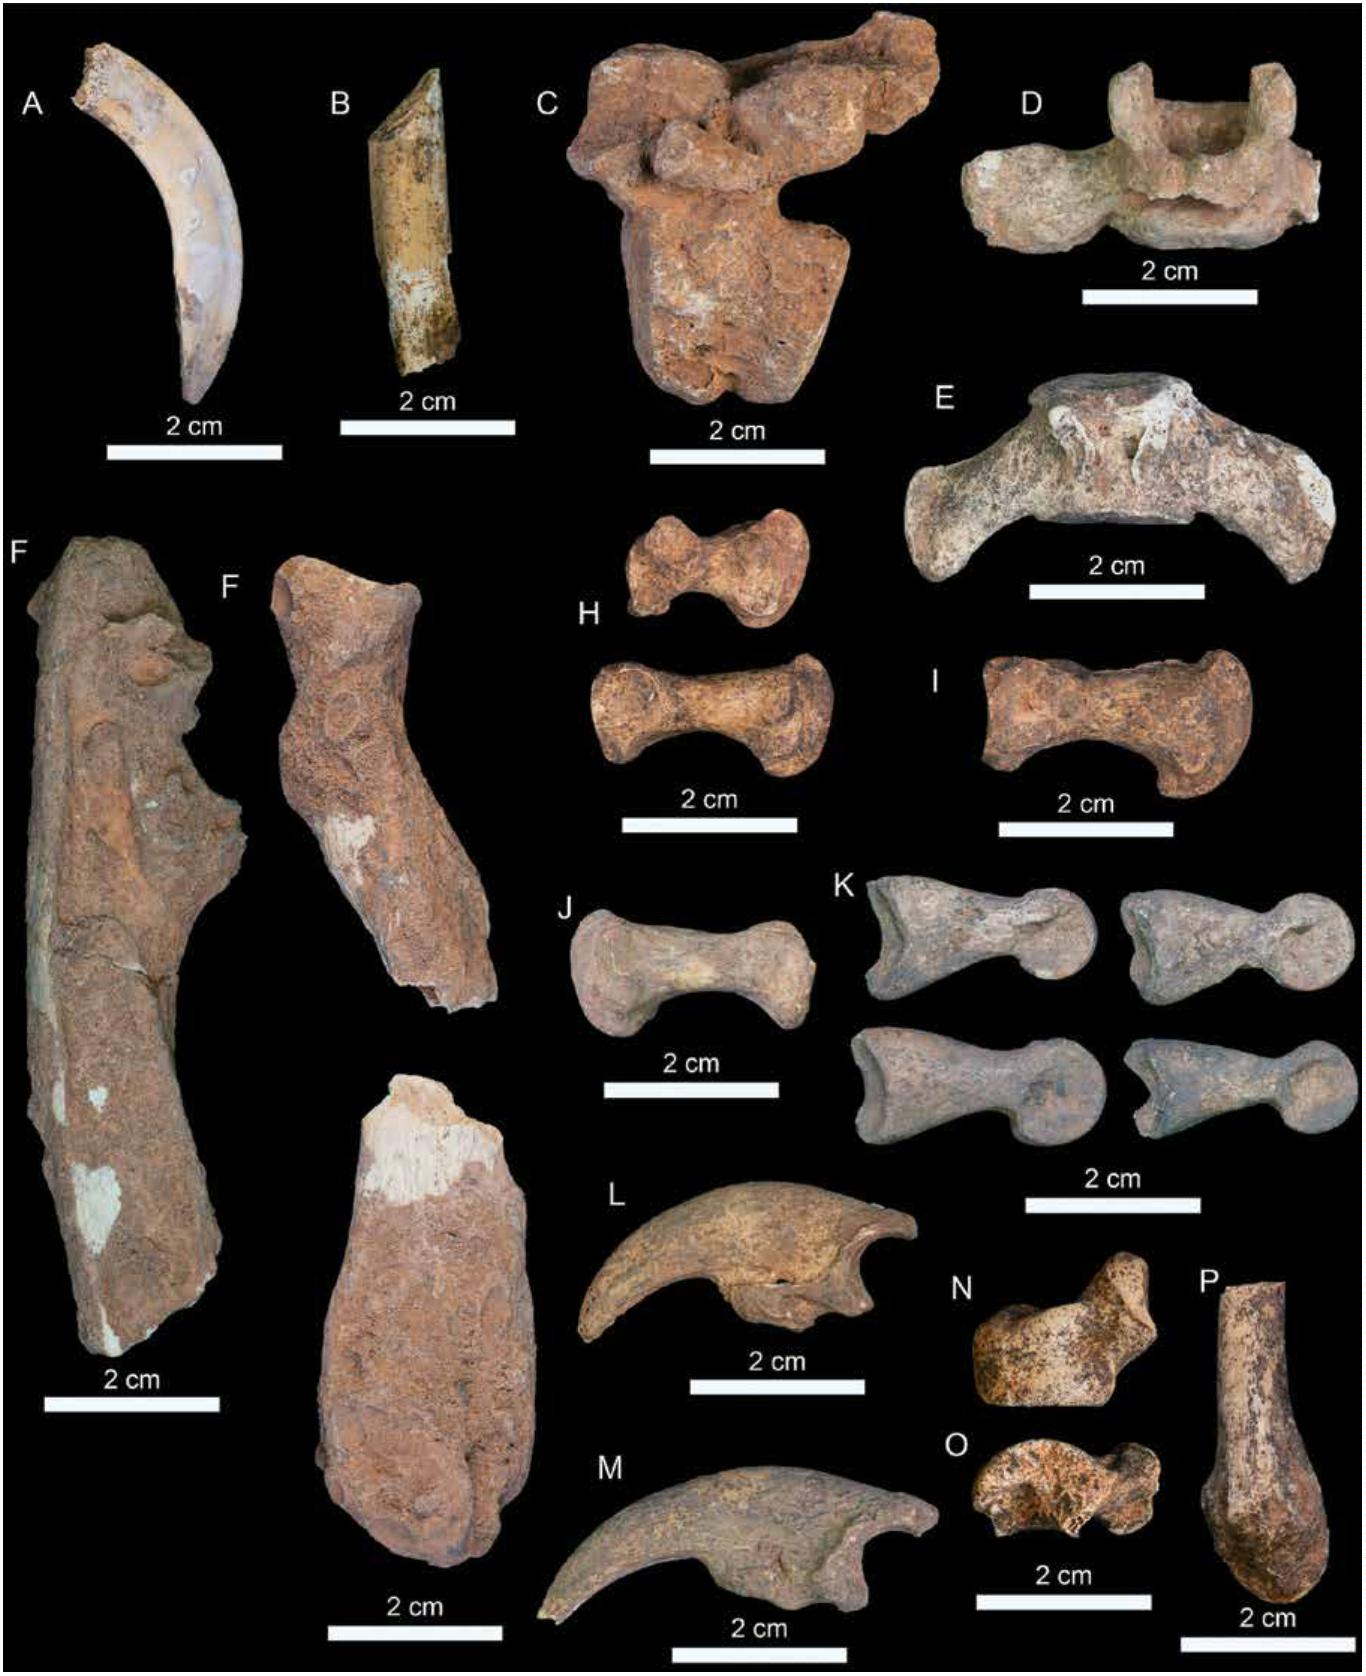
Figura 3. Samana Fauna-Acratocnus
Las vértebras caudales de la unidad UE-8 son de la parte anterior de la serie. Los centros tienen contornos subrectangulares en vista anterior y posterior. Los procesos transversos están orientados posterolateralmente y son ligeramente cilíndricos con rugosidades dorsales y ventrales en sus extremos distales. La superficie ventral de los centros tiene forámenes nutricios relativamente grandes hacia el centro, mientras que hacia los bordes hay canales orientados posterolateralmente que se extienden hacia la superficie posterior de la base de los procesos transversos. La prezigapófisis es robusta y casi vertical. La superficie dorsal del centrum tiene una quilla baja a lo largo del eje central y múltiples forámenes nutricios. En general, las vértebras caudales son similares a las ilustradas por Anthony (1918) para Acratocnus odontrigonus.
Los elementos manuales de Acratocnus ye no han sido descritos, por lo que los especímenes asignados a esta especie aquí se hacen de manera tentativa, basándose en su tamaño y diferencias morfológicas con respecto a los de Parocnus spp. (ver McAfee et al., 2021). Proximalmente, en los metacarpos III, la faceta para el magnum está bien separada de las facetas para los metacarpos II y IV, formando una superficie ligeramente cóncava (e.g., S-CFD-001; S-CFD-015) o superficialmente convexa (e.g., S-CFD-004); y no tan marcadamente cóncava como en Parocnus dominicanus. A lo largo de la superficie proximolateral del metacarpo III la faceta para el metacarpo IV es cóncava, asemejándose a la condición observada en Parocnus serus, en lugar de ser plana como en P. dominicanus (McAffee et al., 2021). Los metacarpos II son más cortos, con superficies proximales formando una superficie articular convexa para el escafoide. La faceta para el metarcarpo III tiene un contorno subrectangular y es superficialmente cóncava, coincidiendo con la forma de la faceta correspondiente en el MCIII. La cresta distal en los metacarpos son ligeramente más estrechas (transversalmente)hacia su extremo palmar; y difieren de Parocnus dominicanus en que el extremo más dorsal de la cresta está más distal que el extremo palmar. En todos los metacarpos, la superficie palmar es cóncava proximodistalmente, similar a la condición en P. dominicanus. Las ligeras diferencias observadas entre los metacarpos se consideran variaciones intraespecíficas, hasta que se describa material adicional.
La ulna parcial de la unidad UE-9 tiene una prominente cresta anterolateral y un contorno curvo en vista lateral o medial; mientras que el radio distal tiene una cresta pronadora prominente y una apófisis estiloides corta. Estos caracteres descartan a estos huesos como pertenecientes a Parocnus o Neocnus y sugieren que estos representan Acratocnus ye (White y MacPhee, 2001; McAfee et al., 2021).
Solo se conserva el extremo distal de una fíbula, la cual en aspectos generales se asemeja a la de Acratocnus odontrigonus descrita por Anthony(1918). La diáfisis de la fíbula está curvada, diferenciándose así de Parocnus que tiene una diáfisis más recta (McAfee et al., 2021). Medialmente, la faceta astragalina de la fíbula tiene un contorno semilunar y cónico, lo cual es consistente con la faceta fibular en forma de embudo observada en el astrágalo.
El astrágalo tiene una superficie tibial paralela, sin divisiones, y con un borde posterior recto; mientras que la faceta fibular es cóncava, de contorno algo semilunar y en forma de embudo, lo cual es consistente con los caracteres diagnósticos de Acratocnus (White and MacPhee,2001). El cuello astragalar (proceso navicular) es largo como en Acratocnus odontrigonus, lo que se interpreta como una adaptación semiarborícolas (Anthony, 1918). La fosa navicular es moderadamente profunda, con bordes anchos que son más amplios que el cuello. Ventralmente, la faceta ectal tiene forma de frijol y está bien separada de la faceta fibular. La faceta cuboidea está poco definida, mientras que la faceta navicular tiene un contorno semicircular y se encuentra principalmente en la superficie medial del proceso navicular.
El material postcraneal de la unidad UE-18 es demasiado grande y difiere morfológicamente de Neocnus, en particular, la epífisis proximal de la tibia tiene una eminencia intercondílea prominente que se extiende a lo largo de la línea media, y una faceta fibular ovalada orientada posterolateralmente. La morfología también es incongruente con Parocnus, al tener una diáfisis curvada de la ulna y la fíbula, un proceso olecraneano de la ulna más pequeño y recto, y una morfología distinta de la epífisis proximal de la tibia y caniniformes más triangulares (McAfee et al., 2021). El material se distingue aún más de Neocnus al tener una ulna más curvada y robusta (White and MacPhee, 2001). La mayoría de los elementos son de tamaño y morfología más cercanos a la observada en Acratocnus odontrigonus y A. antillensis (e.g. Anthony, 1918). El material es consistente con Acratocnus ye al tener una ulna con una cresta anterolateral prominente, una pelvis con una fosa acetabular casi cerrada, la tuberosidad calcánea estrecha y las facetas cuboidea y sustentacular separadas por una cresta distintiva (White and MacPhee, 2001). El calcáneo tiene un reborde tendinoso aplanado como en Parocnus dominicanus, pero carece del foramen calcáneo, tiene una tuberosidad más delgada y la faceta sustentacular que no está desplazada distalmente. La tuberosidad más estrecha y la falta de un foramen calcáneo se asemeja a la condición observada en Acratocnus odontrigonus y A. simorhynchus (Anthony, 1918; Rega et al., 2002).
NEOCNUS Arredondo, 1961
NEOCNUS sp.
(Figura 4A-I, M-N; Tablas 2-13)
Material—Un fémur derecho de un individuo juvenil, sin las epífises(S-CFD-028); un caniniforme inferior derecho, un molariforme inferior izquierdo, un falange ungual izquierdo (S-CFD-130); un húmero proximal derecho (S-CFD-051); un molariforme parcial (S-CFD-123).
Localidad y Horizontes—Encontrado en las unidades UE-8, UE-10, UE-17 y UE-18 en la Cueva Funeraria de Daniel, Samaná.
Observaciones—El caniniforme inferior está aplanado labiolingualmente con una sección transversal subtriangular. La superficie lingual tiene una acanaladura moderadamente profunda, lo cual es diagnóstico para Neocnus (White y MacPhee, 2001). La superficie oclusal está muy desgastada, formando un ángulo de aproximadamente 45º relativo al eje largo del diente. El primer molariforme está ligeramente curvado ventrodistalmente; tiene un contorno subtriangular con surcos longitudinales en las superficies mesiolingual y mesiobucal, similar al molariforme inferior de Neocnus gliriformis (CLV 69). La superficie oclusal es irregular, con el punto más alto en su esquina mesiolingual. El espécimen de la unidad UE-17 es similar a Neocnus sp. de Haití (UF520124) y a Neocnus gliriformis de Cuba (CLV 69), y se encuentra dentro del rango de tamaño de Neocnus dousman (UF 76363).
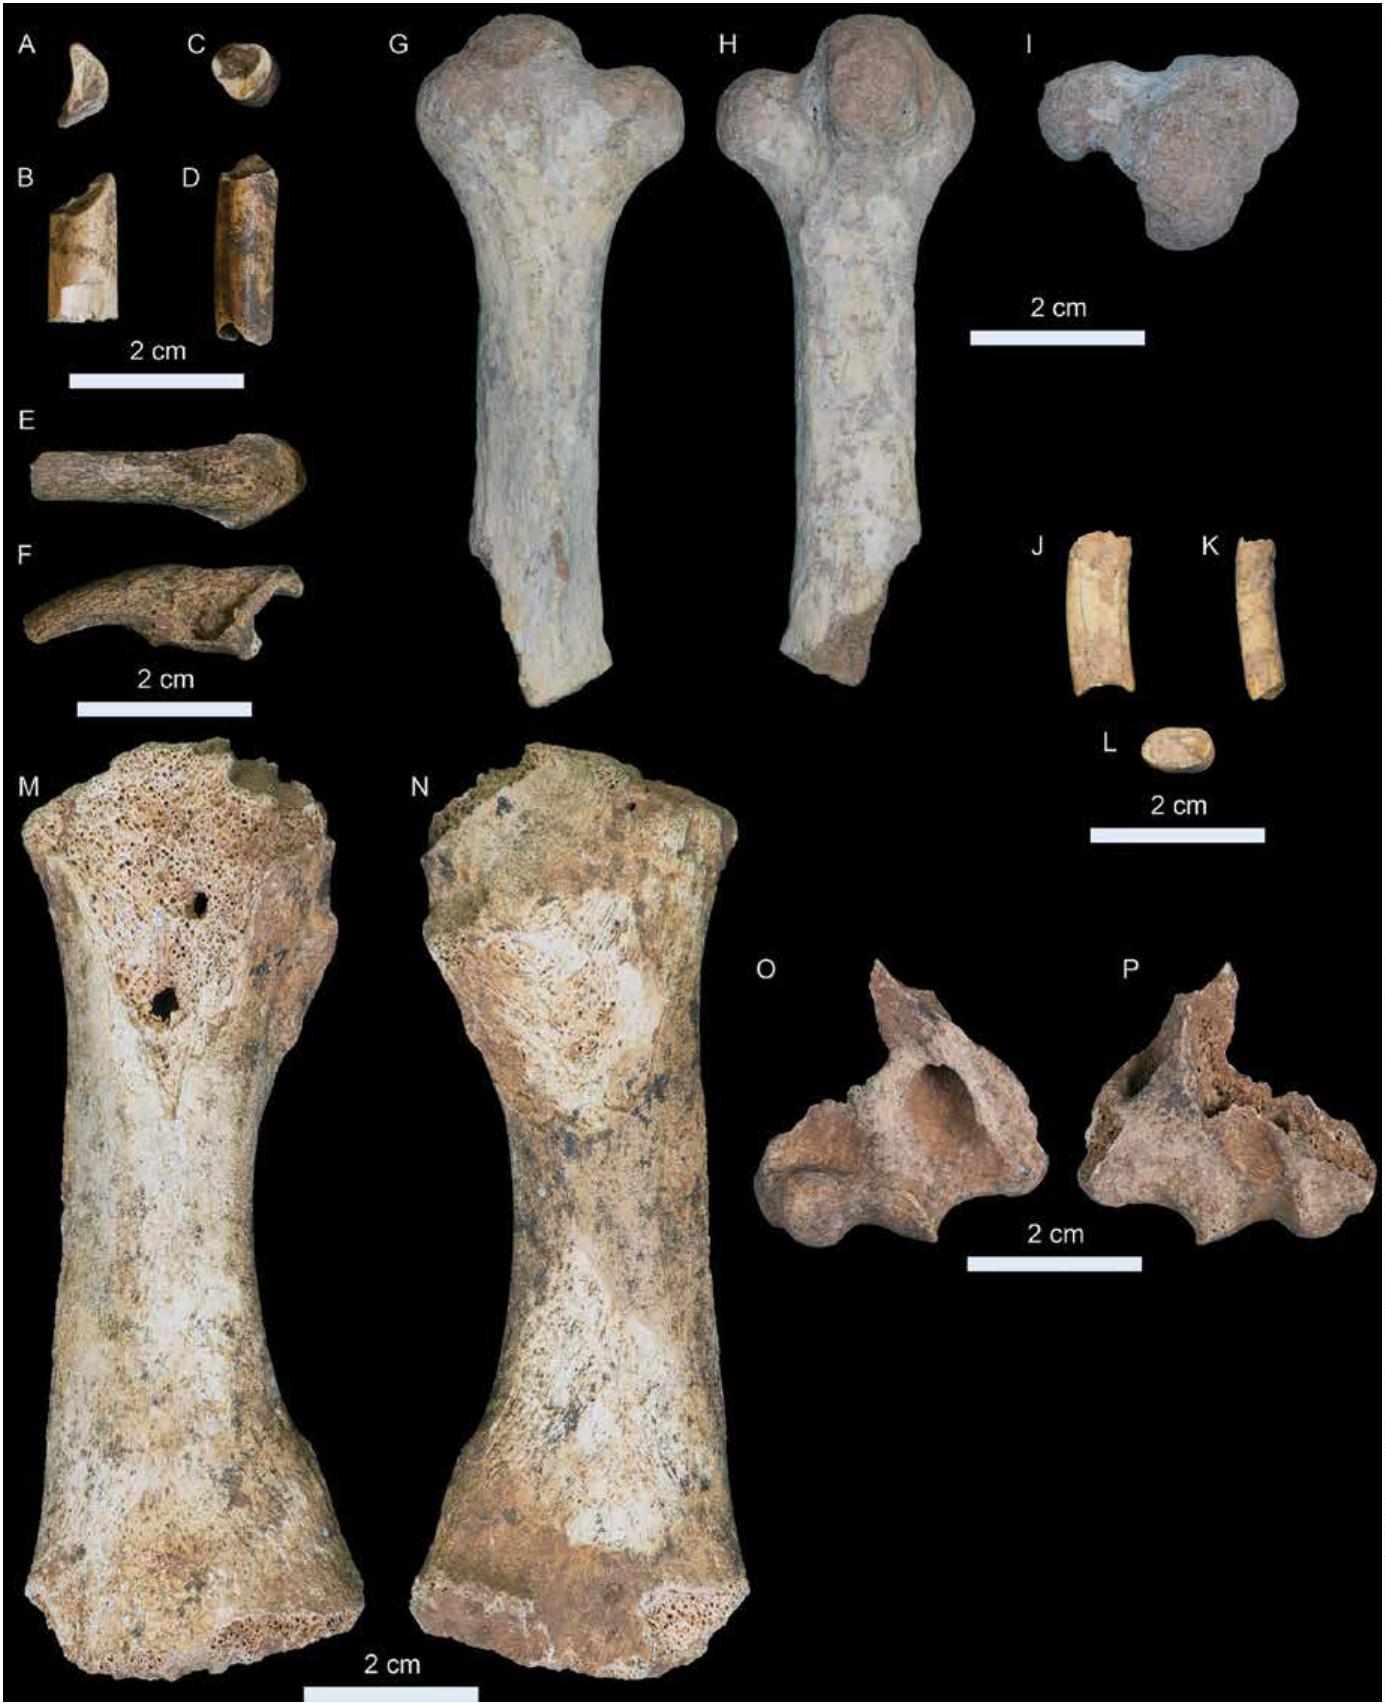
Figura 4. Samana Fauna-Neocnus
El húmero proximal de la unidad UE-18 es demasiado pequeño para corresponder con el resto del material postcraneal de ese horizonte, el cual se ha asignado a Acratocnus ye. En cuanto al tamaño, se encuentra entre los de Neocnus toupiti (UF 156892) y Acratocnus antillensis (CLV uncat.) examinados. La diáfisis es muy delgada, con una cresta pectoral baja e inconspicua, que está desplazada anteromedalmente y que parece no haber alcanzado el nivel de la cresta deltoidea, similar a Neocnus(White and MacPhee, 2001). Los tubérculos (mayor y menor) están bastante por debajo del extremo más proximal de la cabeza; el tubérculo menor es más protuberante y prominentemente medial, similar a la condición observada en Neocnus toupiti (MacPhee et al., 2000). La cabeza es algo pequeña, con un contorno más ovalado, en contraste con la cabeza proporcionalmente más grande y esférica de Acratocnus(MacPhee et al., 2000; White y MacPhee, 2001). La morfología de este húmeros es consistente con Neocnus; sin embargo dado a que es más grande que el húmero de N. toupiti y que los de Neocnus comes (Miller,1929a), y Neocnus dousman, ambos también de La Española, no han sido descrito, se deja en nomenclatura abierta.
El falange ungual es notablemente menos recurvado que el de Acratocnus. La superficie articular proximal es profundamente cóncava, con una prominente cresta medial; el borde dorsal se extiende más proximalmente, sobresaliendo sobre la superficie articular. En vista dorsal o ventral, el núcleo de la garra tiene bordes casi paralelos, mientras que en vista lateral se hace más estrecho hacia el extremo distal; en sección transversal tiene un contorno triangular. La superficie volar del núcleo de la garra es ligeramente cóncava, a diferencia de Acratocnus y Parocnus, donde son plana y cóncava, respectivamente (McAfee y Rimoli, 2019). Los bordes ventromedial y ventrolateral del núcleo de la garra son afilados, con el lado medial formando casi un ángulo de 90º con la superficie dorsal, mientras que lateralmente es ligeramente convexo. Al igual que Acratocnus, la superficie proximoventral tiene un proceso subungular ovalado y forámenes bilaterales ubicados proximalmente al proceso.
El fémur de la unidad UE-8 no muestra la marcada constricción observada en Parocnus, y parece carecer de una fosa trocantérica, otro carácter de Parocnus (McAfee et al., 2021). La diáfisis femoral está aplanada anteroposteriormente, con una cresta anterior baja, mientras que el tercer trocánter está reducido a una rugosidad alargada, al punto que está casi ausente. Estas características son compartidas con Neocnus toupiti, excluyendo a otras especies de Neocnus así como de Acratocnus (White y MacPhee, 2001). Sin embargo, aún incompleto, el fémur juvenil (S-CFD-028) tiene la misma longitud que el fémur completo del holotipo de Neocnus toupiti (UF 156892), por lo que se deja en nomenclatura abierta por el momento. Es posible que estos especímenes representen un morfotipo más grande de N. toupiti, o que representen a Neocnus comes, el cual aún no ha sido descrito en detalle.
NEOCNUS TOUPITI MacPhee, White & Woods, 2000
(Figura 4J-P; Tablas 2-7, 2-13)
Material—Extremo distal de un húmero derecho, costilla anterior derecha (S-CFD-002); tercer molariforme superior izquierdo (S-CFD-116).
Localidad y Horizontes—Encontrado en las unidades Superficie y UE-9 en la Cueva Funeraria de Daniel, Samaná.
Observaciones—El molar superior está comprimido mesiodistalmente y está ligeramente curvado distolingualmente. La superficie oclusal presenta una superficie de desgaste semilunar relativamente plana, delimitada bucal y lingualmente por crestas de bajo relieve. El tamaño es similar al de los molariformes superiores de Neocnus dousman(UF 76363) y Neocnus toupiti (UF 156892), sin embargo comparte con este último una compresión mesiodistal mayor, por lo que se asigna a ese taxón.
El húmero es casi idéntico en tamaño y morfología al húmero asociado al holotipo de Neocnus toupiti (UF 76370). Además de su pequeño tamaño, el foramen epicondylar es visible en vista posterior, lo cual es típico del género (White & MacPhee, 2001). La presencia de Neocnus toupiti en la Cueva Funeraria de Daniel representa un nuevo registro para Samaná y una extensión del rango de distribución de la especie, conocida principalmente en localidades en Haití (MacPhee et al., 2000; White and MacPhee, 2001).
PAROCNUS Miller, 1929
PAROCNUS SERUS Miller, 1929
(Figura 5; Tablas 2-7, 2-11, 2-14)
Material—Fémur izquierdo casi completo, sin el extremo distal(S-CFD-044); un caniniforme superior derecho, un fragmento de la mandíbula derecha, axis, una vértebra cervical, vértebra caudal, falange ungual izquierdo, falange ungual derecho, primer falange, parte proximal de la fíbula derecha, parte proximal de un radio izquierdo y uno derecho (S-CFD-046).
Localidad y Horizontes—Encontrado en las unidades UE-10 y UE-17 en la Cueva Funeraria de Daniel, Samaná.
Observaciones—El material de la unidad UE-17 muestra múltiples caracteres que permiten asignarlo a Parocnus serus. El caniniforme es subtriangular y grande; la mandíbula es más cercana en tamaño a las especies de Parocnus de La Española y posee un foramen mandibular externo alineado con la mitad posterior del tercer molariforme y ubicado sobre una superficie cóncava (en contraste con Acratocnus donde esta superficie es convexa; Silva Taboada et al., 2007); el axis tiene un proceso odontoide ligeramente más puntiagudo y postzigapófisis más prominentes, lo que lo diferencia de Parocnus dominicanus (McAfee et al., 2021). Los radios proximales tienen bordes irregulares que están más expandidos (elevados) proximalmente a lo largo de sus bordes posteriores, mientras que la fíbula tiene su extremo proximal expandido anteroposteriormente y está ligeramente inclinado posterodistalmente, también posee una indentación en su superficie medial que está en la mitad posterior de la superficie, diferenciándose de la ubicación más central observada en P. dominicanus (McAfee et al., 2021). La fíbula tiene una diáfisis recta, lo que la distingue del Acratocnus en donde está curvada.
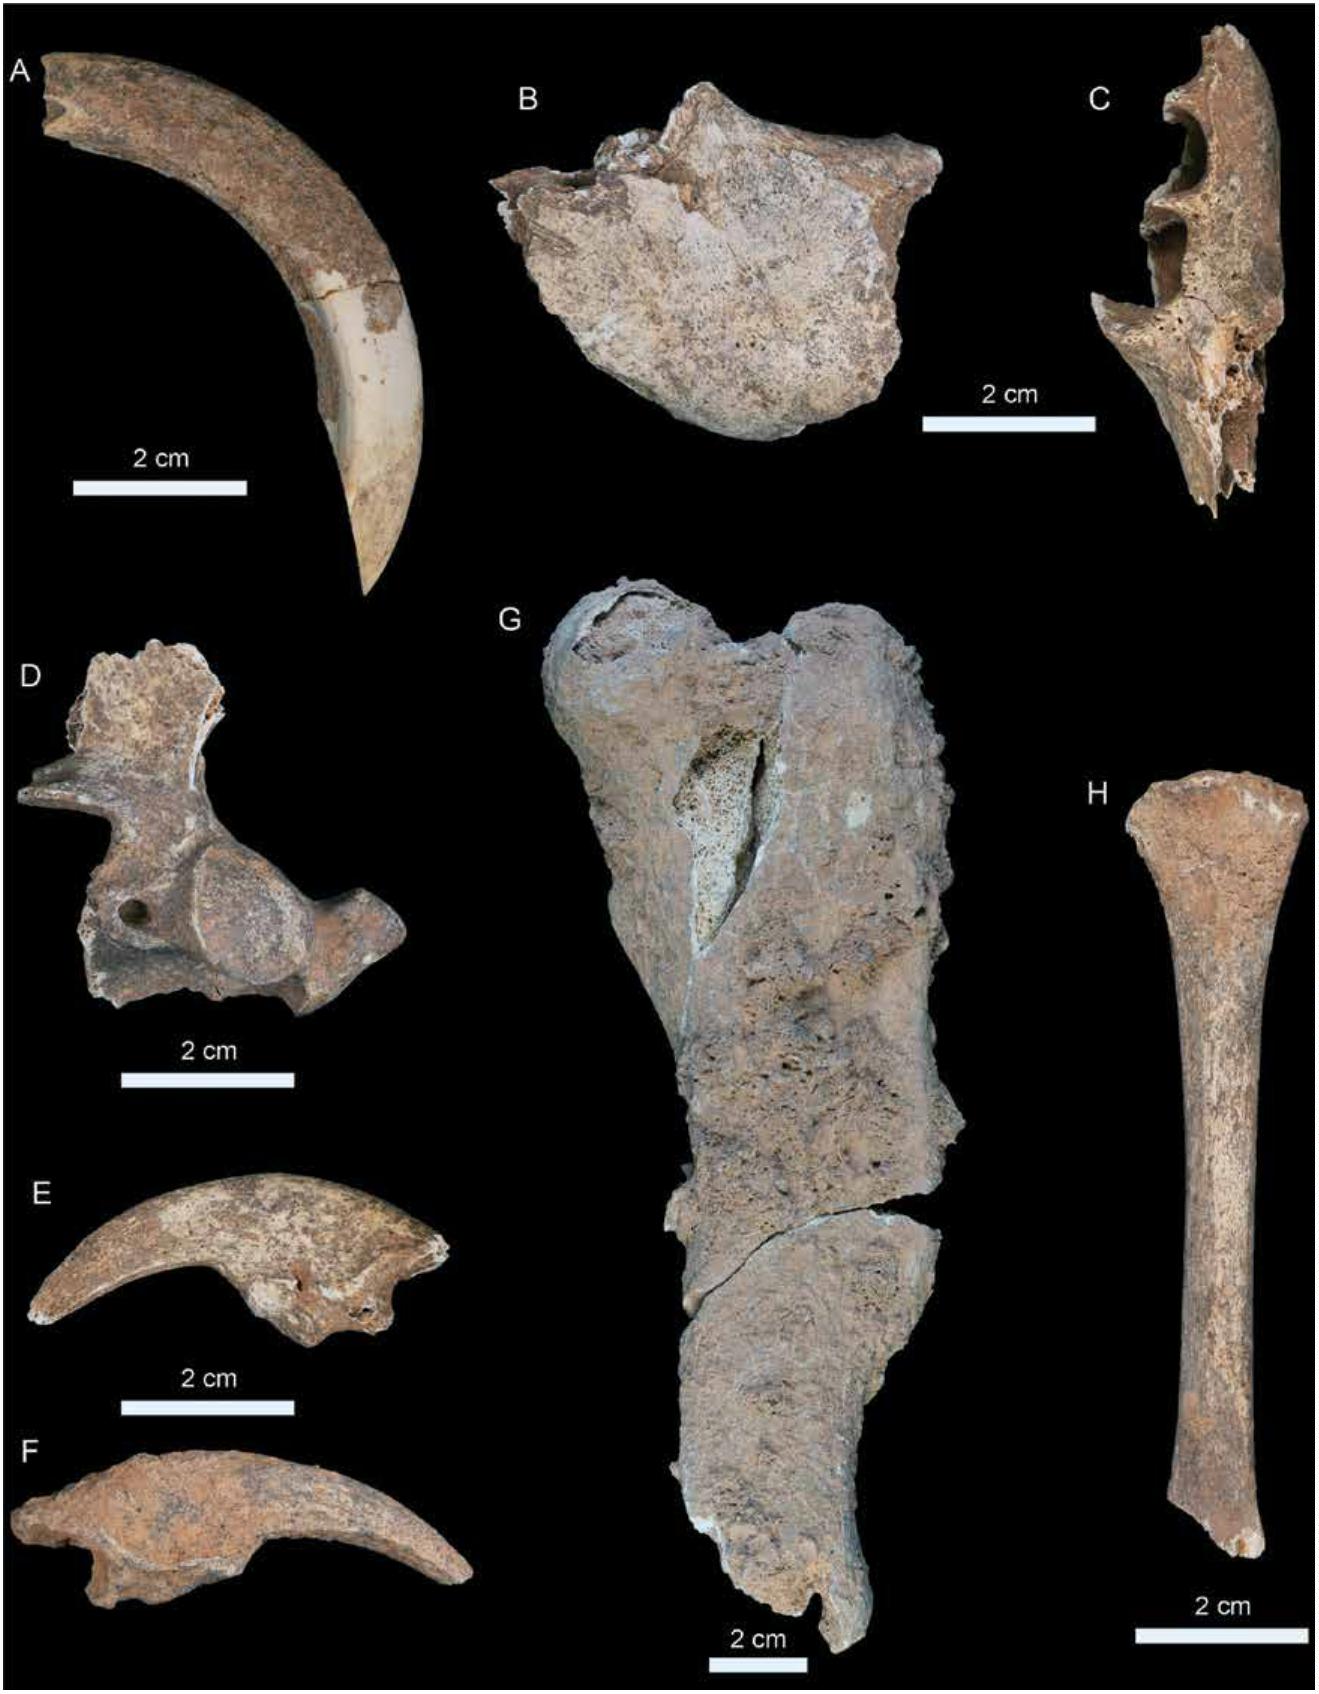
Figura 5. Samana Fauna-Parocnus serus
El fémur de la unidad UE-10 está casi completo, faltando solamente el extremo distal. El mismo muestra características diagnósticas de Parocnus, como una diáfisis que se estrecha transversalmente en un punto distal al tercer trocánter, un trocánter menor reducido, el trocánter mayor ubicado por debajo del nivel de la cabeza femoral y la presencia de una fosa trocantérica en la superficie posterior del trocánter mayor (McAfee et al., 2021). Además de la morfología, su tamaño sugiere que el material pertenece a Parocnus serus, que es la especie más grande del género en La Española (McAfee et al., 2021).
RODENTIA Bowdich, 1821
ECHIMYIDAE Gray, 1825
CAPROMYINAE Smith, 1842
CAPROMYINAE indet.
(Figura 7K-L)
Material—Parte distal de un fémur izquierdo, parte proximal de un fémur derecho (S-AD-004); parte distal de un fémur derecho(S-CFD-007); dos sacros y un fragmento de cráneo (S-CFD-009); parte distal de dos fémures derechos (S-CFD-018); parte proximal de un fémur derecho (S-CFD-023); dos fémures izquierdos y uno derecho(S-CFD-060); parte distal de un húmero derecho y uno izquierdo(S-CFD-061); cinco innominados izquierdos y cuatro derechos (S-CFD-062); parte proximal de dos fémures izquierdos (S-CFD-063); cinco fémures izquierdos y cinco derechos (S-CFD-077); siete fémures izquierdos y cinco derechos, dos ulnas izquierdas (S-CFD-078); tres fémures izquierdos y uno derecho, un innominado izquierdo, un húmero izquierdo (S-CFD-081); un incisivo superior izquierdo, un femur derecho, cinco tibias (S-CFD-089); ocho fémures izquierdos y12 derechos, cuatro ulnas derechas y una izquierda, dos innominados izquierdos, ocho fémures derechos y cinco izquierdos, nueve tibias izquierdas y 9 derechas (S-CFD-091); cuatro humeros izquierdos y tres derechos, dos innominados izquierdos y dos derechos, 12 fémures izquierdos y cinco derechos, cuatro tibias izquierdas y cinco derechas(S-CFD-094); una mandíbula parcial, dos incisivos inferiores derechos, un incisivo superior izquierdo, un innominado izquierdo y uno derecho, parte proximal de dos húmeros izquierdos, una ulna parcial, tres fémures parciales derechos y cuatro izquierdos (S-CFD-097); un incisivo superior derecho, un incisivo inferior derecho, dos calcáneos derecho, un innominado izquierdo, siete fémures derechos y 15izquierdos, 13 tibias izquierdas y 12 derechas, tres ulnas izquierdas y una derecha, siete húmeros derechos y seis izquierdos (S-CFD-104); seis incisivos inferiores derechos y siete inferiores izquierdos (S-CFD-109); 14incisivos derechos y 13 izquierdos (S-CFD-110); tres incisivos superiores derechos, un incisivo inferior izquierdo y un incisivo inferior derecho, un atlas, un innominado derecho, tres tibias izquierdas, tres húmeros derechos, una ulna derecha, cuatro fémures izquierdos y cuatro derechos (S-CFD-121); dos innominados derechos, 11 húmeros izquierdos y seis derechos, 14 tibias izquierdas y ocho derechas, 11 fémures izquierdos y 12 derechos (S-CFD-125); dos fragmentos de cráneo, un incisivo superior izquierdo, cuatro mandíbulas parciales izquierdas y una derecha, tres incisivos inferiores izquierdos y cinco derechos, un calcáneo izquierdo (S-CFD-131); un innominado izquierdos y cuatro derechos, un calcáneo izquierdo y uno derecho, cuatro ulnas izquierdas y una derecha, tres radios, siete tibias izquierdas y seis derechas, cinco fémures izquierdos y siete derechos (S-CFD-138); una bula timpánica, dos mandíbulas parciales izquierdas, un maxilar parcial izquierdo, un premaxilar, siete incisivos superiores, un incisivo inferior, tres incisivos parciales (S-CFD-149).
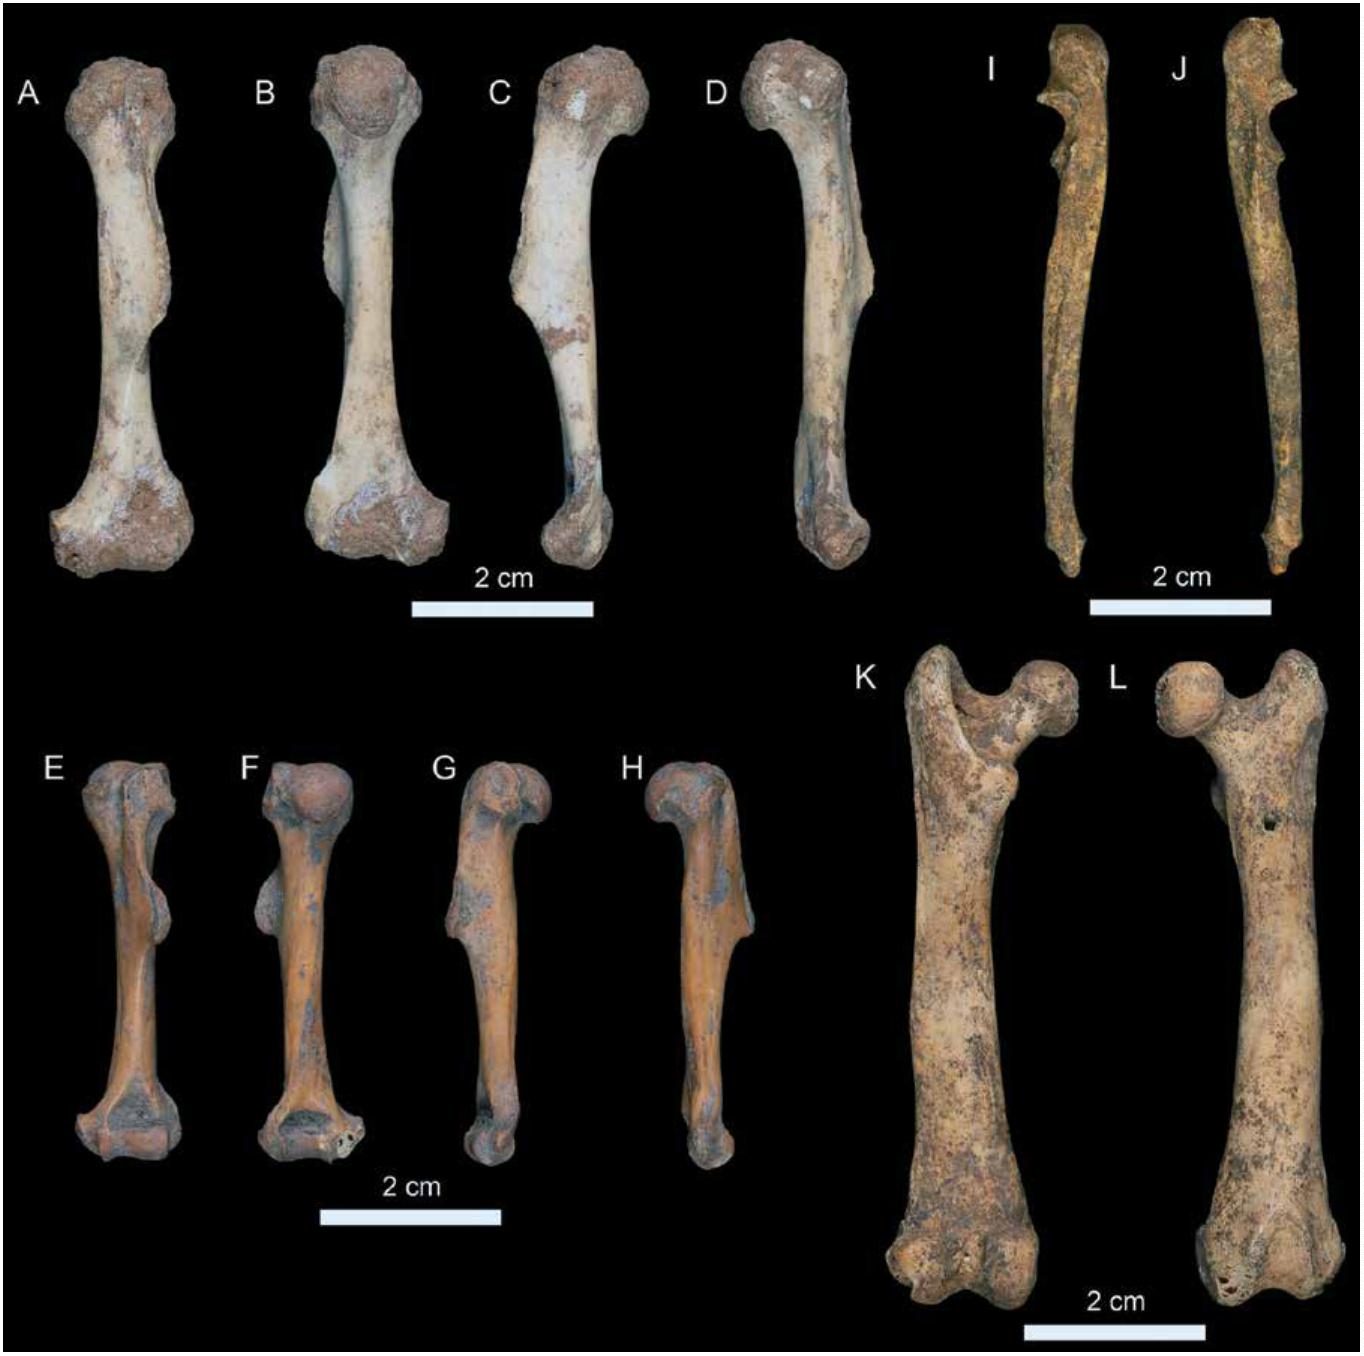
Figura 7. Samana Fauna-Capromyinae postcrania
Localidad y Horizontes—Encontrados en la unidad estratigráfica UE-3 en el Abrigo de Daniel, Samaná; y en las unidad estratigráficas Superficie, UE-4, UE-6, UE-7, UE-8, UE-9, UE-10, UE-17 y UE-18 en la Cueva Funeraria de Daniel, Samaná.
Observaciones—Los especímenes representan a un roedor de tamaño moderado, muy probablemente uno o más de los varios caprominos conocidos de La Española (e.g. Plagiodontia, Isolobodon). La mayoria de los elementos postcraneales de los diversos caprominos conocidos no han sido descritos o se desconoce material asociado a cráneos o mandíbulas; incluso si lo estuvieran, es probalby que no muestren características diagnósticas claras o serían muy pocas. En general, basándose en su tamaño más grande se pueden descartar las especies más pequeñas, como Rhizoplagiodontia lemkei Woods, 1989, y los heteropsominos, Brotomys voratus Miller, 1916, y Brotomys contractus Miller, 1929a. Por otro lado, se puede descartar que pertenezcan al heptaxodóntido Quemisia gravis Miller, 1929a, ya que representa una especie más grande como se discute en su respectiva sección. “Most of the postcranial elements of the various known capromyines are not described or lack associated material, even if so, it is likely they would show none or few diagnostic features. Based on their larger size and absence of cranial material or teeth, the smaller species, such as Rhizoplagiodontia lemkei Woods, 1989, and the heteropsomyines, Brotomys voratus Miller, 1916, and Brotomys contractus Miller, 1929a, can be ruled out. On the other hand, the femora are smaller and with more rounded shafts than the ones assigned below to the large heptaxodontid Quemisia gravis” Miller, 1929a.
PLAGIODONTIA Cuvier, 1836
PLAGIODONTIA sp.
(Figura 6C-D, 6H, 7K-L; Tablas 2-15, 2-16, 2-21)
Material—Un M2 ó M3 superior derecho (S-CFD-005); una mandíbula izquierda casi completa, sin dientes (S-CFD-098); un dp4 y un m1 inferiores izquierdos (S-CFD-010); un incisivo inferior izquierdo(S-CFD-029); un M2 ó M3 superior izquierdo (S-CFD-117); un M1 ó M2 superior derecho (S-CFD-047); un M1 ó M2 superior derecho, una mandíbula parcial derecha, sin dientes (S-CFD-053); un M1 ó M2 superior derecho (S-CFD-124); un M1 ó M2 superior derecho (S-CFD-149).
Localidad y Horizontes—Encontrado en las unidades estratigráficas Superficie, UE-4, UE-8, UE-9, UE-10, UE-17 y UE-18 en la Cueva Funeraria de Daniel, Samaná.
Observaciones—Los molares superiores se caracterizan por sus pliegues altamente oblicuos y por tener dimensiones bucolingual y mesiodistal similares. En Plagiodontia hay un gran solapamiento entre los pliegues reentrantes bucales (metaflexus) y linguales (hypoflexus)(Woods, 1989), lo cual los distingue de otros géneros como Hexolobodon y Rhizoplagiodontia.
Las mandíbulas se identifican como Plagiodontia spp. Basándose en la presencia de una fosa retromolar posterior a la hilera alveolar, dentro la cual se encuentra el foramen mandibular; la diastema entre el incisivo y el dp4 tiene una cresta aguda a lo largo de su borde dorsal, lo cual no se ha observado en otros géneros de caviomorfos presentes en la Cueva Funeraria de Daniel. Los alveolos molares tienen una cresta bucal ubicada anteriormente y dos crestas linguales hacia la parte media y posterior del alveolo. La mandíbula más completa, proveniente de la unidad UE-18 presenta un reborde lateral prominente (= cresta masetérica) y una cresta aguda a lo largo del borde dorsolingual del diastema, lo cual distingue aún más a Plagiodontia. El incisivo representa a un individuo de tamaño similar a Hexolobodon phenax de la misma localidad. Sin embargo, se asigna a Plagiodontia ya que en sección transversal tiene esquinas disto- y mesiobucales más agudas, a diferencia del perfil más redondeado de Hexolobodon phenax.
PLAGIODONTIA cf. P. AEDIUM Cuvier, 1836
(Figura 6E-G; Tablas 2-16, 2-21)
Material—Un m1 inferior izquierdo (S-CFD-020); una mandíbula parcial derecha, incluyendo el m1, una mandíbula parcial izquierda y una derecha, ambas sin dientes (S-CFD-033).
Localidad y Horizontes—Encontrados en las unidades estratigráficas UE-6 y UE-9 en la Cueva Funeraria de Daniel, Samaná.
Observaciones—Los dientes inferiores de las unidades UE-6 y UE-9difieren de los de Plagiodontia araeum por tener pliegues labiolingualmente más cortos, mientras que los molares son más cortos mesiodistalmente, a diferencia de los molares más alargados de P. araeum. Las mandíbulas muestran características típicas de Plagiodontia, como los alveolos de los incisivos que se extienden hasta el nivel de m1, una fosa retromolar relativamente profunda la cual alberga el foramen mandibular y una cresta maseterica lateral prominente. Las mandíbulas más completas de UE-9 representan individuos con masa corporal de entre 3.9 y 4 kg.
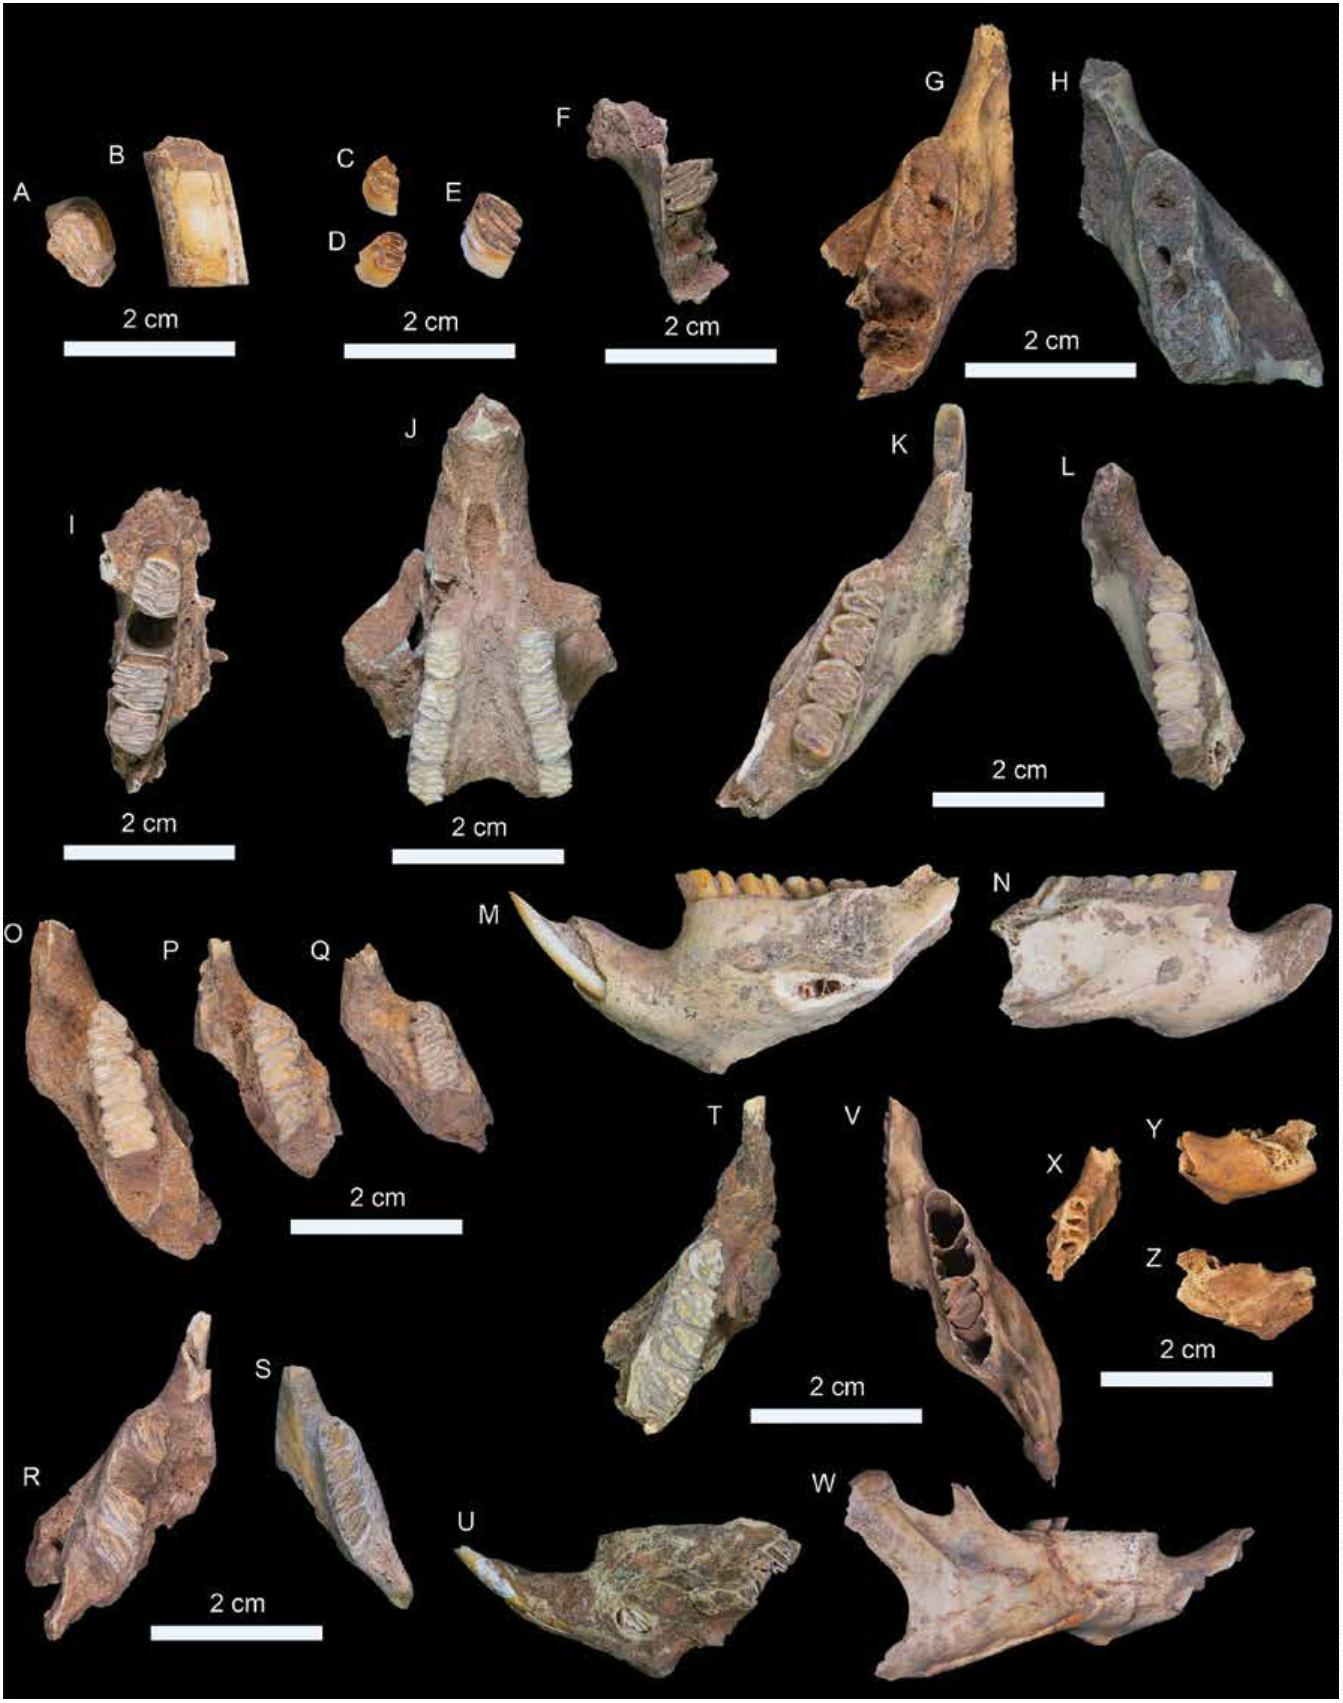
Figura 6. Samana Fauna-Capromyine Rodents
PLAGIODONTIA ARAEUM Ray, 1964a
(Figura 6A-B; Tabla 2-15)
Material—Un dP4 superior derecho (S-CFD-118).
Localidad y Horizontes—Encontrado en la unidad estratigráfica UE-9 en la Cueva Funeraria de Daniel, Samaná.
Observaciones—La morfología general del premolar de la unidad UE-9 es similar al holotipo de Plagiodontia araeum (MCZ 7675; Ray,1964a). Se caracteriza por ser más comprimido en dirección mesiodistal-distobucal y su tamaño más grande que otras especies de Plagiodontia (Ray, 1964a; Hansford et al., 2012). Al igual que en otras especies de Plagiodontia, hay una superposición entre los pliegues reentrantes bucales (metaflexus) y linguales (hypoflexus) (Woods, 1989). Los pliegues también son altamente oblicuos.
HEXOLOBODON Miller, 1929a
HEXOLOBODON PHENAX Miller, 1929a
(Figura 6I-Q; Tablas 2-15, 2-16, 2-17, 2-21)
Material—Una mandíbula derecha parcial con el dp4 y un cráneo parcial con los dP4 derecho e izquierdo (S-CFD-003); una mandíbula izquierda parcial con m2 el (S-CFD-006); maxilar izquierdo incluyendo dP4, M1-3, mandíbula izquierda con m1-2, mandíbula izquierda con dp4 y m2, mandíbula izquierda con dp4, m1-3 (S-CFD-011); maxilar derecho con dP4 y M2-3, un M3 derecho (S-CFD-019); cráneo parcial con dP4 y M1-3 izquierdos y derechos, mandíbula izquierdo parcial con incisivo, dp4 y m1, mandíbula parcial izquierda con dp4 y m1-2, un molar inferior izquierdo, un incisivo superior izquierdo, un incisivo inferior izquierdo, un incisivo inferior derecho (S-CFD-0030); cráneo parcial con dP4, m2-3 izquierdos y M2-3 derechos, una mandíbula derecha con dp4 y m1, una mandíbula derecha con dp4 y m1-3, una mandíbula izquierda con dp4 y m1, dos mandíbulas izquierdas con dp4y m1-2, dos incisivos inferiores derechos (S-CFD-034); un cráneo parcial incluyendo el premaxilar y el maxilar izquierdo con M1, un cráneo parcial con ambos maxilares y el dP4 izquierdo, un maxilar izquierdo sin dientes, un m2 inferior izquierdo, una mandíbula izquierda con incisor y dp4, una mandíbula izquierda con dp4, una mandíbula parcial izquierda con dp4 y m1-3, una mandíbula izquierda con dp4 y m1-2, una mandíbula derecha parcial con m2, tres mandíbulas derechas parciales con dp4 y m1, una mandíbula parcial derecha con dp4 y m1-2, una mandíbula derecha parcial con incisivo, dp4 y m1-2 (S-CFD-042); una mandíbula izquierda parcial con incisivo, dp4 y m1-3 (S-CFD-045); una mandíbula parcial izquierda con dp4 y m1, un dp4 derecho, un dp4 izquierdo (S-CFD-132); cráneo parcial con dP4 y M1-2 derechos, una mandíbula parcial izquierda con dp4 y m1, una mandíbula parcial izquierda con incisivo, dp4 y m1, una mandíbula parcial izquierda con m1-2, una mandíbula parcial derecha con dp4 y m1-2, una mandíbula parcial derecha con m1-2, una mandíbula parcial derecha con incisivo, dp4 y m1 (S-CFD-048); un cráneo parcial con dP4 derecho y dP4, M1-2izquierdos, una mandíbula parcial con dp4 y m1-2, una mandíbula derecha sin dientes, una mandíbula parcial derecha con incisivo, dp4y m1-2, una mandíbula parcial izquierda con dp4 (S-CFD-054); dos húmeros izquierdos y uno derecho (S-CFD-064); un húmero izquierdo(S-CFD-100); un dp4 inferior derecho, un molar inferior derecho, un dP4 superior derecho, un M2 superior derecho (S-CFD-119).
Localidad y Horizontes—Encontrados en las unidades estratigráficas Superficie, UE-4, UE-6, UE-8, UE-9, UE-10, UE-17 y UE-18 en la Cueva Funeraria de Daniel, Samaná.
Observaciones—Los especímenes que conservan los dientes se identifican fácilmente como Hexolobodon phenax debido a su morfología distintiva. Los incisivos aislados se asignan a esta especie porque su esquina distobucal es redondeada, a diferencia de formar una esquina más aguda como ocurre en Plagiodontia spp., y porque carecen de las estrías longitudinales observadas en Quemisia gravis. Los dientes superiores (dP4, M1-3) de Hexolobodon se caracterizan por la presencia de pliegues reentrantes ligeramente oblicuos y por tener dos en la superficie bucal (paraflexus y mesoflexus) y y dos en la lingual (hypoflexus y flexus posterolingual), que se superponen ligeramente (Miller, 1929a; Woods, 1989). El premolar (dP4) se diferencia principalmente por tener un anterolofio más prominente, mientras que en los molares(M1-3) es más plano, y por lo tanto, son mesiolingualmente más cortos que el dP4. La mandíbula de Hexolobodon phenax se distingue de las de Isolobodon y Plagiodontia por la carencia de una fosa retromolar. El dp4 tiene raíces mesiales y distales que están aplanadas mesiodistalmente y bien separadas distalmente, fusionándose en dirección a la corona, pero manteniendo surcos longitudinales incipientes en las superficies bucal y lingual que se extienden hasta la base de la corona. Las coronas de los premolares inferiores son típicas de la especie, carecen de una capa de dentina externa (difiriendo así de Isolobodon), tienen un pliegue reentrante orientado oblicuamente en el lado bucal (hipoflexid) y un par de pliegues más transversales en el lado lingual (mesoflexid y metaflexid), y un anteroflexido incipiente (pliegue mesiolingual). Los molares inferiores (m1-3) son similares, con la excepción de que carecen de un anteroflexido y son por lo tanto mesiodistalmente más cortos que el dp4. El húmero es similar al de Isolobodon (ver abajo), con la diferencia principal que es más grande y la cabeza del húmero es ovalada en lugar de redondeada.
ISOLOBODON Allen, 1916
ISOLOBODON sp.
(Figura 7E-H; Tablas 2-16, 2-17)
Material—Una mandíbula izquierda con m2-3 (S-CFD-043); un húmero izquierdo y uno derecho (S-CFD-065); un húmero izquierdo parcial, un húmero completo derecho y uno izquierdo (S-CFD-066); un fémur derecho proximal, un húmero izquierdo y uno derecho(S-CFD-067); una ulna izquierda (S-CFD-082); un húmero izquierdo(S-CFD-101); un molar inferior derecho (S-CFD-152).
Localidad y Horizontes—Encontrados en las unidades estratigráficas UE-6, UE-9 y UE-18 en la Cueva Funeraria de Daniel, Samaná.
Observaciones—Los dientes preservados en la mandíbula de la unidad UE-9 tienen características que recuerdan tanto a Isolobodon portoricensis como a I. montanus, por lo que se deja en nomenclatura abierta. Con una longitud de 15 mm de la hilera dental, este espécimen representa un individuo con una masa corporal de 0.81 kg.
Los húmeros se asemejan en tamaño y morfología a los especímenes ilustrados por Anthony (1918) y se asignan tentativamente a este género. La cabeza humeral es esférica y orientada posteriormente; el tubérculo mayor se extiende proximalmente hasta el mismo nivel de la cabeza, mientras que el menor está unos pocos milímetros por debajo. La cresta deltopectoral es baja en su parte proximal, volviéndose más prominente distalmente y recurvado lateralmente, formando un ángulo relativamente agudo en su extremo distal, aproximadamente al nivel central de la diáfisis. Distalmente, el epicóndilo lateral es prominente, con un contorno algo redondeado cuando se ve anteriormente. El borde medial de la tróclea tiene un diámetro mayor a la cabeza de la articulación distal. La cresta supraepicondilar lateral es baja y corta; el foramen supratroclear tiene un contorno ovalado.
ISOLOBODON MONTANUS (Miller, 1922)
(Figura 6R-S; Tablas 2-16, 2-21)
Material—Una mandíbula parcial izquierda con dp4, m2-3 (S-CFD-012); una mandíbula derecha parcial con dp4 y m1-3 (S-CFD-035); una mandíbula parcial izquierda y una derecha, ambas sin dientes (S-CFD-092); una mandíbula derecha casi completa, sin dientes (S-CFD-133).
Localidad y Horizontes—Encontrados en las unidades estratigráficas UE-4, UE-9 y UE-17 en la Cueva Funeraria de Daniel, Samaná.
Observaciones—Los especímenes se identifican como Isolobodon montanus basándose en los molares, especialmente m2-3, que son anchos labiolingualmente y comprimidos mesiodistalmente, con el metaflexido unido al hipoflexido, lo cual es característico de la especie(Miller, 1922). La morfología general de la mandíbula es similar a la de Isolobodon portoricensis, con una cresta maseterica que no es prominente lateralmente, lo cual la distingue de las especies de Plagiodontia. Posterior al alveolo del tercer molar (m3) hay una fosa retromolar poco profunda, característica que está ausente en Hexolobodon phenax; la fosa retromolar está presente de manera similar en Plagiodontia y donde se encuentra el foramen mandibular, en Isolobodon el foramen mandibular está desplazado hacia una posición más posteromedial. Los alvéolos de los molares en Isolobodon montanus están más comprimidos mesiodistalmente que los de I. portoricensis, pero las crestas longitudinales en los bordes bucal y lingual están dispuestos de manera similar. Los alvéolos también están en un ángulo mayor con respecto al plano horizontal en las mandíbulas de I. montanus. Los alvéolos de los incisivos se extienden posteriormente hasta el nivel de m3.
ISOLOBODON PORTORICENSIS Allen, 1916
(Figura 6T-W; Tablas 2-16, 2-21)
Material—Cuatro mandíbulas parciales izquierdas y una derecha, todas sin dientes (S-CFD-099); mandíbula derecha, incluyendo m2(S-CFD-103); un dP4 derecho (S-CFD-102); una mandíbula izquierda casi completa, sin dientes (S-CFD-079); un dp4 izquierdo (S-CFD-036); una mandíbula izquierda parcial, incluyendo el incisivo, dp4 y m1-3(S-CFD-055); un dp4 izquierdo (S-CFD-151).
Localidad y Horizontes—Encontrado en las unidades estratigráficas Superficie, UE-4, UE-8, UE-9 y UE-18 en la Cueva Funeraria de Daniel, Samaná.
Observaciones—Los dientes premolares y molares superiores e inferiores tiene pliegues reentrantes orientados aproximadamente a45º en relación al eje longitudinal de los dientes; estos pliegues reentrantes son profundos, y formando surcos longitudinales a lo largo de sus superficies lingual y bucal (Allen, 1916; Woods, 1989). Los premolares superiores e inferiores se diferencian de los molares por la presencia de un paraflexo y un anteroflexido, respectivamente, y por ser más alargados mesiodistalmente. El dP4 derecho tiene pliegues reentantes que no están tan angulados y los fléxidos están separados, además de carecer de la compresión mesiodistal que generalmente se observa en I. montanus.
Los molares inferiores son típicos de Isolobodon portoricensis, con pliegues reentrantes no tan oblicuos como en I. montanus, y el metaflexido y el hipoflexido separados por una delgada conexión entre el hipolófido y el posterolófido (Allen, 1916; Woods, 1989). Las mandíbulas son características de Isolobodon; la cresta maseterica no es prominente, carecen de una cresta diastemática y con una fosa retromolar reducida, mientras que el foramen mandibular está fuera de la fosa y es visible en vista dorsal (a diferencia de las especies de Plagiodontia), y el incisivo se extiende posteriormente hasta el extremo distal del tercer molar. Se identifica además como I. portoricensis debido a que los alveolos molares no están comprimidos mesiodistalmente, como lo están en I. montanus. Los alveolos inferiores difieren de los de Plagiodontia al tener una sola cresta bucal en una posición anterior y dos crestas linguales igualmente espaciadas, que dividen la pared alveolar lingual en tercios iguales.
HETEROPSOMYINAE Anthony, 1917
BROTOMYS Miller, 1916
BROTOMYS sp.
(Figura 6X-Z)
Material—Mandíbula izquierda parcial, sin dientes (S-CFD-080).
Localidad y Horizontes—Encontrado solamente en la unidad estratigráfica UE-8 en la Cueva Funeraria de Daniel, Samaná.
Observaciones—El espécimen consiste de una mandíbula parcial perteneciente a un individuo adulto o subadulto. Es notablemente mucho más pequeña que las de otros equimíidos (e.g. Plagiodontia, Isolobodon, Hexolobodon) de La Española. Los dientes no están preservados, pero los alvéolos son multiradiculares (dos en dp4, tres en m1), lo que descarta a los capromíinos y heptaxodóntidos, y parece ser una característica de los heteropsomínos antillanos (MacPhee y Flemming, 2003). El tamaño es similar al de especímenes de Brotomys spp. examinados (e.g. USNM 255810). La raíz mesial de dp4 es redondeada mientras que la distal está comprimida mesiodistalmente, al igual que las de m1. Los alvéolos de los incisivos se extienden más allá del nivel del m1.
HEPTAXODONTIDAE Anthony, 1917
QUEMISIA Miller, 1929a
QUEMISIA GRAVIS Miller, 1929a
(Figura 8; Tablas 2-15, 2-16, 2-18, 2-19, 2-20, 2-21)
Material—Un M2 superior derecho (S-CFD-008); un m2 inferior derecho (S-CFD-021); un fémur distal derecho (S-CFD-022); un incisivo inferior izquierdo (S-CFD-068); un incisivo inferior derecho(S-CFD-107); un fémur proximal derecho (S-CFD-024); una mandíbula parcial izquierda con inciso, dp4, m1-2 (S-CFD-037); un húmero derecho parcial (S-CFD-093); un incisivo derecho superior, un M1 ó M2 superior izquierdo, y un húmero izquierdo parcial (S-CFD-120); un dP4 superior parcial (S-CFD-134); un fémur izquierdo completo, un extremo proximal del fémur izquierdo, un extremo distal de un fémur izquierdo (S-CFD-135); un húmero derecho incompleto (S-CFD-136); porción anterior de un cráneo, incluyendo el dP4 y M1 derecho y el M1 izquierdo (S-CFD-049); una mandíbula izquierda parcial con dp4y m1 (S-CFD-056).
Localidad y Horizontes—Encontrado en las unidades estratigráficas Superficie, UE-6, UE-7, UE-9, UE-17 y UE-18 en la Cueva Funeraria de Daniel, Samaná.
Observaciones—Quemisia es una de las especies de roedores menos conocidas de La Española y el Caribe. Los especímenes de la Cueva Funeraria de Daniel, que incluyen un cráneo parcial además de otro material craneal y postcraneal, son cruciales para entender completamente su morfología y relación con otros roedores caviomorfos antillanos. El cráneo parcial carece de los incisivos, pero los alvéolos tienen un contorno subtriangular y forman un arco amplio que se extiende hasta el nivel anterodorsal de la raíz del dP4. Los premaxilares son robustos, con los alvéolos de los incisivos formando un abultamiento lateral a lo largo de su longitud. Ventral al abultamiento de los incisivos, los premaxilares descienden ventromedialmente, volviéndose más quilliformes. En la superficie palatina, el foramen incisivo es relativamente grande y alargado anteroposteriormente, abriendo en una hendidura que continúa anteriormente haciéndose más estrecha y extendiéndose hasta aproximadamente 6 mm de los alvéolos de los incisivos, mientras que posteriormente la hendidura es más superficial y transversalmente más ancha. Los dientes postcaninos son largos y curvados dorsolateralmente, con el lado cóncavo orientados distobucalmente de manera que los dientes son divergentes en sus extremos, similar a la condición observada en el heptaxodóntido de Puerto Rico, Elasmodontomys obliquus. Los dientes conservados en el cráneo, dP4 y M1, están organizados de manera escalonada entre sí, de modo que la esquina mesiolingual del M1 se apoya contra la esquina distolingual del dP4.
Los incisivos se destacan por su gran tamaño. Su superficie externa(bucal) se distingue por la presencia de surcos longitudinales, similar a la condición observada en Elasmodontomys obliquus (UPRMP 3230, UPRMP 3231, UPRMP 3232). Los incisivos tienen una sección transversal rectangular a triangular, como en Elasmodontomys. Los dientes postcaninos superiores e inferiores se distinguen por su forma subrectangular, siendo más anchos (en dirección mesiobucal-distolingual) que largos (en dirección mesiolingual-distobucal), con un patrón multilaminar que consiste en láminas de esmalte que se alternan con capas de dentina paralelas entre sí, pero altamente oblicuas con respecto al eje largo del paladar. Las láminas son heterogéneas, con un borde delantero muy delgado y un borde trasero más grueso, similar a otras especies antillanas, específicamente Elasmodontomys obliquus, Amblyrhiza inundata y Borikenomys praecursor (Ray, 1965; Marivaux et al.., 2020). El dP4 y otros dientes superiores se caracterizan por estar comprimidos mesiodistalmente, con pliegues reentrantes estrechos que casi se extienden hacia el lado opuesto y están dispuestos en un ángulo altamente oblicuo con respecto al eje largo de la hilera dental. Están compuestos por tres lófidos: ánterolofo, protolofo y mesolofo (siguiendo la nomenclatura utilizada en Marivaux et al., 2020). El anterolófido está aislado, separado de los otros lófidos por el paraflexo. Los dientes postcaninos inferiores son tetralaminados, con pliegues estrechos altamente oblicuos (metalofulídos I, neomesolofido, hipolófido y posterolofido) separados por láminas de esmalte. Las dos láminas más mesiales, el anteroflexo y mesoflexo, se extienden casi hasta el borde bucal, mientras que la más distal, el metaflexo+hypoflexo, se extiende por toda la anchura del diente, separando el posterolofido de los otros pliegues.
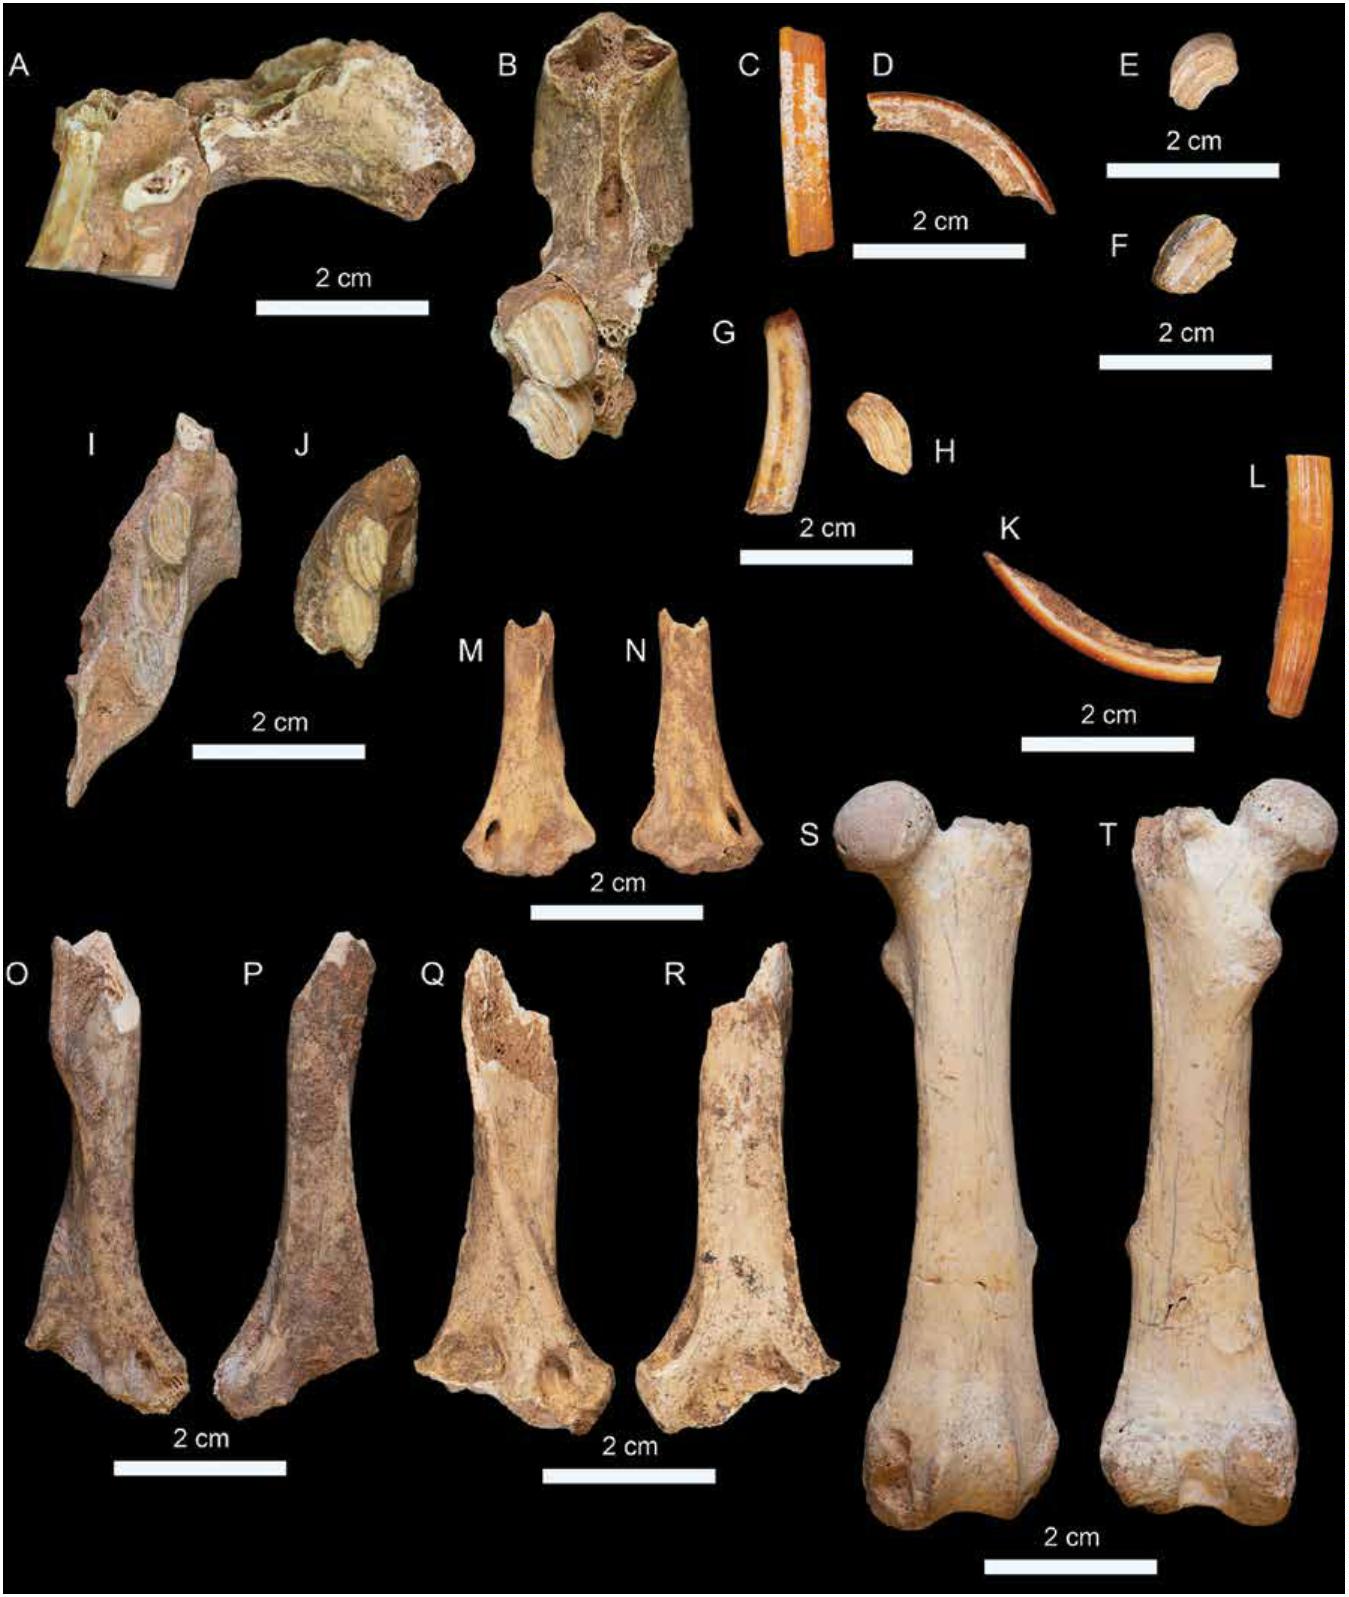
Figura 8. Samana Fauna-Quemisia gravis
El húmero parcial de la unidad UE-9 se distingue por ser aplanado anteroposteriormente, con una cresta deltopectoral prominente que se extiende distomedialmente para unirse al puente sobre el foramen subraepicondíleo medial. La cresta hace que en sección transversal la diáfisis tenga una forma triangular. En la superficie distolateral del húmero, la cresta supraepicondílea lateral es más aguda. Proximal al cóndilo se encuentra una fosa supracondílea imperforada. El foramen supraepicondíleo medial es visible en vista anterior y posterior, aunque abre en dirección craneal a lo largo de la superficie posterior; el foramen tiene un contorno ovalado. La fosa coronoidea se encuentra lateral al foramen, es más pequeña pero aparentemente más profunda que la fosa del olécranon, que parece ser más superficial, más amplia transversalmente y ubicada en una posición más distal. La morfología general es claramente más distinta de otros húmeros de roedores de La Española y no puede asignarse a otros taxones contemporáneos como solenodonotans o primates. Aunque la presencia de un foramen supraepicondíleo medial se asemeja a la condición observada en Solenodon y algunos primates (pero no en Antillothrix), otras características, como la morfología de la cresta deltopectoral demuestra que se trata de un roedor de gran tamaño. El húmero derecho parcial de la unidad UE-17 carece de los extremos proximal y distal. La cresta deltopectoral es prominente y ligeramente recurvada anteromedialmente, similar a la condición en otros “heptaxodontidos” (por ejemplo, Elasmodontomys obliquus; Anthony, 1918). Distalmente la cresta deltopectoral disminuye abruptamente, continuando en dirección distal como una cresta más sutil. Similar al espécimen de la unidad UE-9, la diáfisis se vuelve más plana anteroposteriormente a medida que se acerca a la articulación distal. Similarmente, en la parte distal, hay un foramen supraepicondylar medial lo cual distingue estos húmeros de todos los otros húmeros de roedores de la Cueva Funeraria de Daniel o incluso otros “heptaxodontidos’’ como E. obliquus. En general, el espécimen S-CFD-135 se asemeja al espécimen S-CFD-093, aunque es menos robusto, y se interpreta como perteneciente a un individuo ontogenéticamente más joven.
El fémur es notable por lo aplanado que es la diáfisis en dirección anteroposterior. La cabeza del fémur es grande, esférica y orientada ligeramente anterodorsalmente. El trocánter mayor está incompleto, pero parece haberse extendido proximalmente hasta el nivel de la cabeza o más allá, formando una fosa trocantérica relativamente profunda, aunque no tan profunda ni expandida hacia la región intertrocantérica como en Capromys pilorides (LACM 90858) ó Dinomys branickii(LACM 90854). El trocánter menor forma un tubérculo y está orientado medialmente. La diáfisis está comprimida anteroposteriormente a lo largo de su longitud, volviéndose más amplio transversalmente hacia el extremo distal. Justo más allá de la mitad distal de la diáfisis, hay un tercer trocanter pequeño, similar a la condición observada en Dinomys branickii (LACM 90854). Los bordes medial y lateral de la tróclea patelar tienen un ancho anteroposterior similar, y son convergentes en dirección proximal. Dorsal a la tróclea patelar hay una fosa superficial. Distalmente, el cóndilo medial es más grande y se extiende más distalmente que el cóndilo lateral. Previamente, solo se había asignado un fémur parcial a este taxón, el cual también tiene una diáfisis anteroposteriormente aplanada (Miller, 1929b; Ray, 1964b, Ray, 1965).
Muchos de los caracteres dentales observados en Quemisia son compartidos con otros roedores antillanos, particularmente Borikenomys praecursor, Elasmodontomys obliquus y Amblyrhiza inundata. Elasmodontomys, Amblyrhiza y Quemisia han sido tradicionalmente incluídos dentro de la familia “Heptaxodontidae”, pero los dos primeros ahora se consideran con afinidades a los chinchilloides (Marivaux et al., 2020; Marivaux et al., 2022; Da Cunha et al., 2023. Los chinchilloides llegaron a las Antillas Mayores a principios del Oligoceno, representados por Borikenomys praecursor y un segundo taxón de mayor tamaño (aún sin nombre), y el grupo estuvo presente en la región hasta el Cuaternario tardío(Marivaux et al., 2020). Es probable que Quemisia también forma parte de esta radiación antillana de chinchilloides junto con Clidomys osborni Anthony, 1920, y Xaymaca fulvopulvis MacPhee and Flemming, 2003, pero esto debe ser investigado en mayor detalle.
SOLENODONOTA Brace, Thomas, Dalén, Burger, MacPhee, Barnes and Tur vey, 2016
NESOPHONTIDAE Anthony, 1916
NESOPHONTES Anthony, 1916
NESOPHONTES sp.
(Figura 9J-K; Tabla 2-22)
Material—Fémur derecho (S-CFD-072); ulna derecha (S-CFD-069).
Localidad y Horizontes—Encontrados en las unidades estratigráficas UE-6 y UE-8 en la Cueva Funeraria de Daniel, Samaná.
Observaciones—El fémur es comparativamente más pequeño que el de Nesophontes edithae (Anthony, 1918), pero por lo demás es casi idéntico en morfología. La cabeza femoral es esférica con una pequeña fóvea hacia su mitad posterior (desplazada hacia afuera), con un cuello corto y orientado ligeramente cranealmente. El trocánter mayor se extiende proximalmente al nivel de la cabeza y tiene una fosa trocantérica poco profunda pero alargada. El trocánter mayor está conectado al trocánter menor a través de una cresta baja y curvada. El trocánter menor es prominente, casi tanto como el mayor, y se extiende principalmente en dirección medial. El tercer trocánter es el más pequeño, proyectándose lateralmente. Una cresta tenue se extiende desde la cara anterolateral del trocánter mayor para unirse medialmente al tercer trocánter. La diáfisis es recta con una sección transversal redondeada.
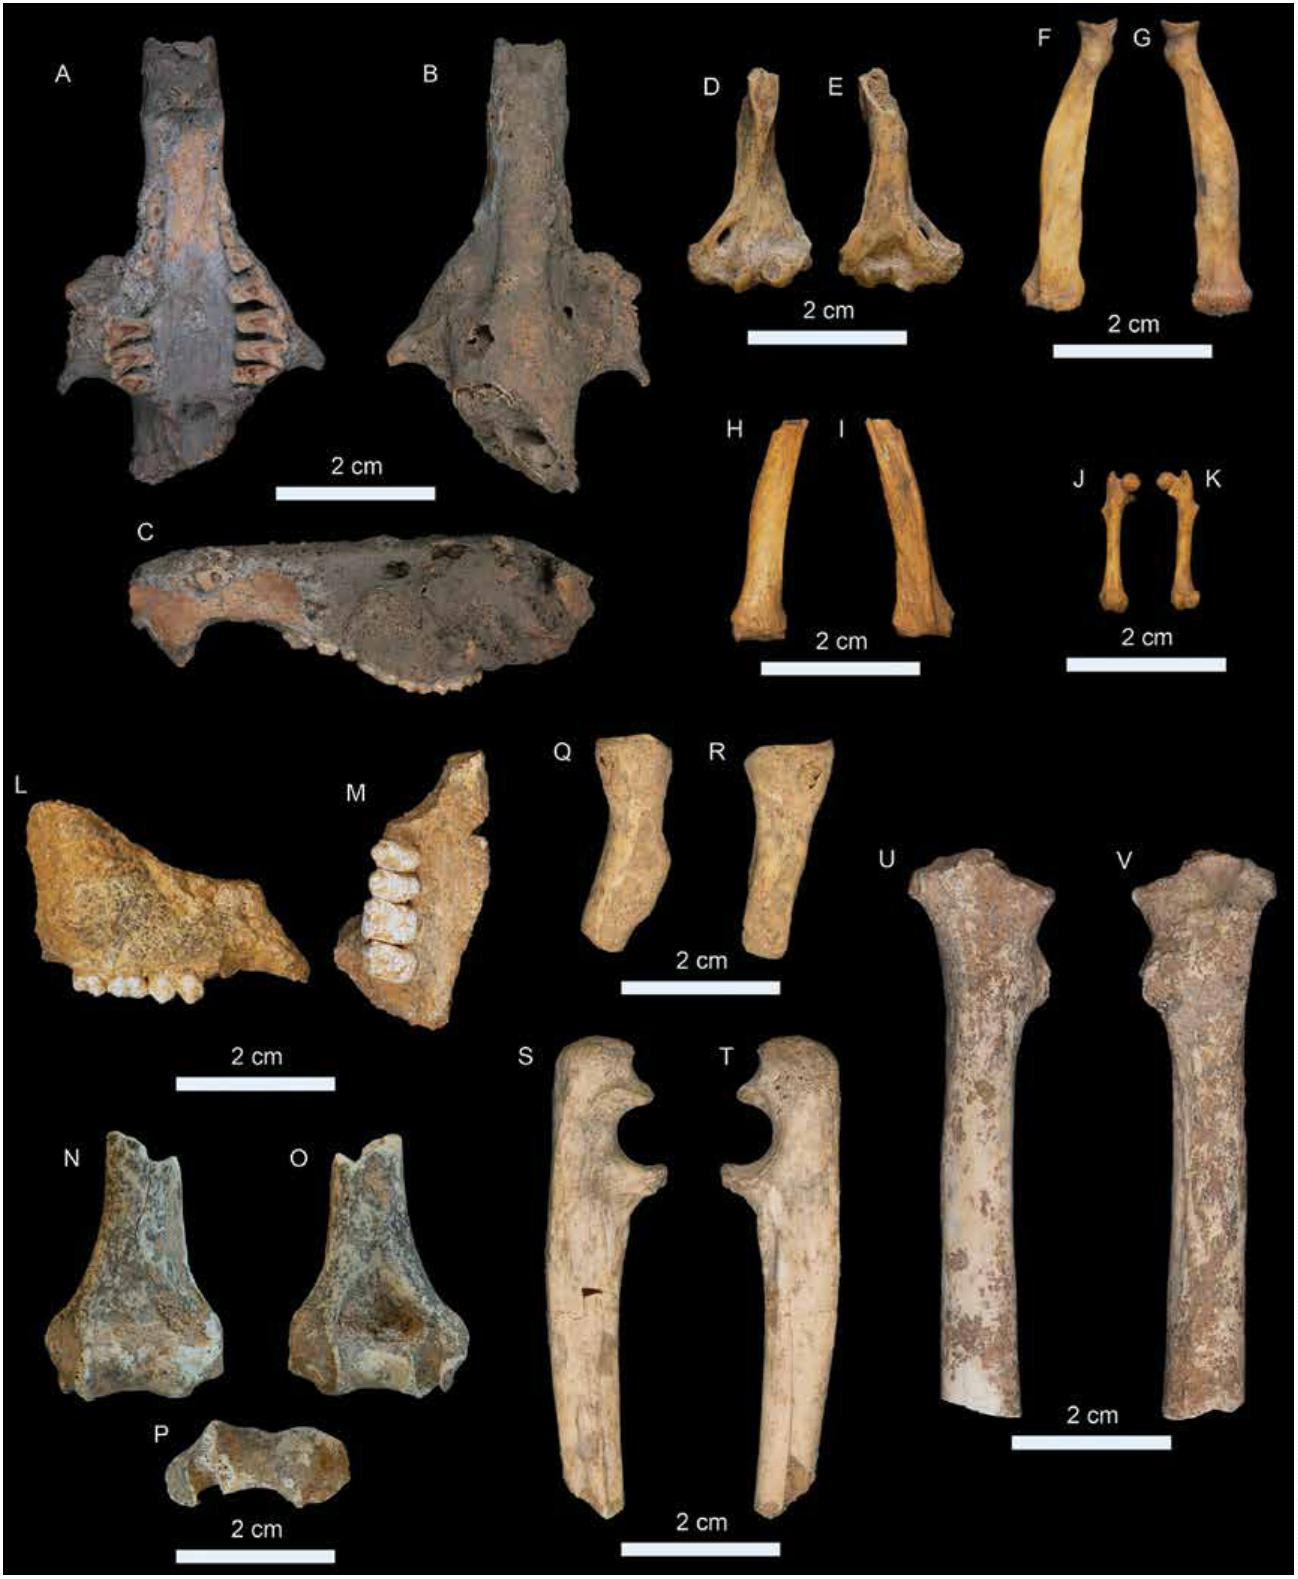
Figura 9. Samana Fauna-Antillothrix & Solenodonotans
Distalmente, la tróclea patelar está bien desarrollada; con los cóndilos son de tamaño similar, con el cóndilo medial extendiéndose más distalmente que el cóndilo lateral.
SOLENODONTIDAE Dobson, 1882
SOLENODON Brandt, 1833
Solenodon paradoxus Brandt, 1833
(Figura 9A-I; Tablas 2-23, 2-24)
Material—Un cráneo parcial, incluyendo la mayoría de la dentadura (S-AD-005); un radio izquierdo (S-CFD-070); un radio derecho(S-CFD-084); parte distal de un húmero izquierdo (S-CFD-137).
Localidad y Horizontes—Encontrado en la unidad estratigráfica UE-3 en el Abrigo de Daniel, y en las unidades estratigráficas UE-6, UE-8 y UE-17 en la Cueva Funeraria de Daniel, Samaná.
Observaciones—Actualmente, solo hay una especie viva de Solenodon en La Española, el solenodonte dominicano (S. paradoxus). El cráneo parcial del Abrigo de Daniel muestra características diagnósticas de Solenodon paradoxus, tales como la falta de un diastema entre el canino superior © y el primer premolar (P1), y la presencia de una cúspide accesoria en el canino superior (Ottenwalder, 2001). En adición, las dimensiones craneales y dentales del cráneo parcial del Abrigo de Daniel se encuentran dentro de la muestra del norte de la República Domincana de S. paradoxus listados por Ottenwalder (2001). Una segunda especie, Solenodon marcanoi (Patterson, 1962), también se conoce de depósitos cuaternarios, pero era considerablemente más pequeña (Ottenwalder,2001) que el cráneo del Abrigo de Daniel. Existe un solo informe previo de Miller (1929b) de Solenodon paradoxus encontrado en contexto arqueológico cerca de la desembocadura del Río San Juan en Samaná.
Se colectó aproximadamente la mitad de un húmero de la unidad UE-17 en la Cueva Funeraria de Daniel. La cresta deltopectoral es robusta, extendiéndose distalmente hasta más allá de la mitad de la diáfisis. La cresta está ligeramente expandida transversalmente, formando una superficie plana, dando al húmero una sección transversal en forma de T en la parte central de la diáfisis. La cresta deltopectoral se inclina distomedialmente hacia el puente sobre el foramen epicondileo. El foramen se abre en dirección posterodorsal a anterolateral, y tiene un contorno alargado. El epicóndilo medial es dorsoventralmente ancho y relativamente robusto. La cabeza troclear y el labio medial tienen aproximadamente el mismo diámetro. Posteriormente, la fosa del olécranon es ovalada transversalmente y profunda, mientras que en la superficie anterior la fosa del coronoide es más pequeña y redondeada, ubicada principalmente proximal a la cabeza de la tróclea. El epicóndilo lateral es pequeño y continúa proximalmente como una cresta supraepicondílea aguda y recurvada posterodorsalmente. La cabeza troclear tiene una superficie plana en su cara anterior.
Los radios izquierdo y derecho de la Cueva Funeraria de Daniel carecen de las epífisis distal y proximal, respectivamente, pero por lo demás son similares. La cabeza tiene un contorno ovalado con un borde posterior elevado. La tuberosidad radial tiene un contorno subredondeado y está ubicada en la superficie posteromedial, en una posición distal a la cabeza. La diáfisis es notablemente comprimida mediolateralmente con una cresta pronadora prominente y orientada de manera oblicua relativa al eje longitudinal del hueso y que distalmente forma el borde lateral de la hendidura para los músculos extensores del brazo. La superficie lateral de la diáfisis es ligeramente cóncava con una cresta diagonal en su centro que divide la superficie en una fosa proximal y una distal. La superficie medial es plana a ligeramente convexa. Además de su tamaño, que también descarta a Solenodon marcanoi, la morfología general del radio es bastante distinta a la de Nesophontes (por ejemplo, ver Anthony, 1918).
PRIMATES Linnaeus, 1758
ANTHROPOIDEA Mivart, 1864
PLATYRRHINI Geoffroy, 1812
ANTILLOTHRIX MacPhee, Horovitz, Arredondo,
Jiménez Vásquez, 1995
ANTILLOTHRIX BERNENSIS (Rímoli, 1977)
(Figura 9L-V; Tablas 2-25, 2-26)
Material—Un maxilar derecho, incluyendo P3-4 y M1-2 (S-CFD- 013); ulna derecha parcial y un fémur derecho parcial (S-CFD-095); radio izquierdo proximal (S-CFD-090); un húmero distal izquierdo(S-CFD-108).
Localidad y Horizontes—Encontrado en las unidades UE-4, UE-7 y UE-9 en la Cueva Funeraria de Daniel, Samaná.
Observaciones—La maxila representa un individuo adulto. Como en el holotipo y otros ejemplares craneales descritos de Antillothrix bernensis, los premolares (P3-4) son más anchos labiolingualmente que largos mesiodistalmente; M1 es más grande que el M2, y ambos molares poseen una cresta distal considerada como uno de los caracteres diagnósticos para este taxón (Rímoli, 1977; MacPhee et al., 1995; Kay et al., 2011; Rosenberger et al., 2011; Halenar et al, 2017). En adición, en el M1 el hipocono es de bajo relieve, bulboso y está localizado en el cíngulo lingual y no conectado al trigón, mientras que el M2 carece de un hipocono, lo que se asemeja a la condición descrita en otros especímenes de A. bernensis, diferenciándose así de Insulacebus toussaintiana, que retiene un hipocono prominente en el M2 (Rosenberger et al.,2011; Cooke et al., 2011).
El húmero distal izquierdo de la unidad estratigráfica UE-7 es de tamaño similar a Alouatta seniculus (LACM 90816). La diáfisis es relativamente recta y la cresta supraepicondilar lateral está ligeramente curvada anteriormente. En la parte medial, no hay foramen entepicondilar. El epicóndilo lateral no es muy prominente, contrastando significativamente con el cóndilo medial que está recurvado posterior y medialmente, formando una fosa acanalada. La fosa del olecranón es profunda, con un contorno subtriangular y más o menos centrada sobre la tróclea, mientras que la fosa radial es comparativamente pequeña y superficial. La parte más proximal de la diáfisis es más ancha mediolateralmente que profunda anteroposteriormente. La desviación posterior del epicóndilo medial es relativamente alta (86º) en comparación a los platirrinos actuales e incluso que otros platirrinos antillanos como Parallouatta varonai (65-68º) (MacPhee y Meldrum, 2006). Este alto grado de desviación sugiere que Antillothrix era un cuadrúpedo arbóreo o con hábitos más semiterrestres que otros platirrinos, incluyendo otros taxones antillanos (Meldrum et al., 1990; MacPhee y Meldrum, 2006; Tallman y Cooke, 2016).
El borde posterior de la ulna está ligeramente curvada distal al nivel de la escotadura radial, siendo más recta en la parte proximal. La diáfisis es anteroposteriormente más ancha que mediolateralmente, y sus bordes anterior y posterior están redondeados. Distal a la escotadura radial hay una fosa alargada y somera, similar a la condición observada en Paralouatta varonai (MacPhee y Meldrum, 2006). La escotadura troclear es profunda, con un proceso coronoide prominente. La faceta articular radial está empotrada, casi al ras con la superficie lateral de la diáfisis, similar a Xenothrix mcgregori y P. varonai (MacPhee y Meldrum, 2006). En la parte proximal, el proceso del triceps parece ser relativamente corto y obtuso, como en otros primates antillanos(MacPhee and Meldrum, 2006). Distomedial a la tróclea hay una fosa alargada que está delimitada medialmente por un borde afilado que marca el origen del músculo flexor profundo de los dedos, similar a lo observado en X. mcgregori y P. varonai (MacPhee y Meldrum, 2006). La superficie del olecranón de la escotadura troclear tiene un ala lateral que es más prominente que la ala medial, la cual está casi ausente. La superficie articular de la tróclea se extiende lateralmente y ligeramente en dirección proximal sobre el proceso del tríceps, similar a X. mcgregori más que a P. varonai (MacPhee y Meldrum, 2006).
El radio solo conserva la porción que incluye la cabeza y la tuberosidad bicipital. La cabeza es esférica en vista proximal con una superficie articular ligeramente cóncava. La circunferencia articular tiene una proyección prominente en su borde lateral, mientras que estás más deprimida medialmente, dándole un contorno más o menos sinuoso. La tuberosidad bicipital es prominente, con un contorno ovalado. En su morfología general se asemeja mucho a Alouatta seniculus (LACM90816) y a P. varonai (MacPhee y Meldrum, 2006).
El fémur parcial carece de la epífisis proximal, lo que sugiere que proviene de un individuo inmaduro; el extremo distal del hueso está roto. La diáfisis tiene una sección transversal casi circular, siendo ligeramente más ancho transversalmente que anteroposteriormente. La cabeza parece haber estado orientada ligeramente en dirección anteromedial. El trocánter mayor parece haber formado una fosa trocantérica relativamente profunda. No hay una cresta intertrocantérica entre el trocánter mayor y el menor. El trocánter menor es prominente, en forma de perilla y orientado medialmente. La línea áspera desciende desde la base del trocánter menor curvando ligeramente hacia el borde posterior del hueso.
Actualmente el único otro espécimen del área de Samaná referido a Antillothrix bernensis consiste de una tibia, originalmente descrita por Miller (1929b) y referida a este taxón en trabajos posteriores (Ford,1986; MacPhee y Meldrum, 2006). El maxilar derecho de la Cueva Funeraria de Daniel representaría el primer registro inequívoco de Antillothrix bernensis en el noreste de La Española, mientras que los elementos postcraneales reportados aquí serían consistente con la presencia de este taxón en la región. El radio y la ulna son de tamaño similar a Alouatta seniculus (LACM 90816). El fémur parcial también es probablemente similar en tamaño al de A. seniculus, sin embargo, esto implicaría que le falta aproximadamente la mitad distal, lo que sugiere que el fémur referido por Rosenberger et al. (2011) es relativamente más corto. En general, el fémur se asemeja más al ilustrado por Cook y Tallman (2012) con la excepción de la cresta intertrocantérica en el espécimen de la Cueva Funeraria de Daniel.
Discusión
Últimas fechas de aparición
Las últimas fechas de aparición pueden proporcionar información adicional sobre la edad de un depósito, particularmente en ausencia de datación radiométrica más precisa. En el Abrigo de Daniel, todos los taxones identificados a nivel de especie aún están presentes en la región. Mientras tanto, algunas de las especies encontradas en los distintos niveles de la Cueva Funeraria de Daniel podrían ser de utilidad para establecer una fecha mínima de acuerdo con las últimas fechas de aparición publicadas. Entre los mamíferos extintos, los taxones más significativos que deben considerarse como informativos en relación a la edad del depósito son las siguientes:
Antillothrix bernensis última fecha de aparición: 4264 ±196 BP (Rímoli, 1977).
Isolobodon montanus última fecha de aparición: 5500 ±30 BP (ViñolaLópez et al., 2022a).
Chelonoidis marcanoi última fecha de aparición: 7810 ±30 BP (Kehlmaier et al., 2021).
Acratocnus ye última fecha de aparición: 9031 ±272 BP (MacPhee et al., 2000).
Parocnus serus última fecha de aparición: >14200 BP (Steadman et al., 2005).
Estas últimas fechas de aparición podrían sugerir una edad mínima de 9031 ±272 BP para las unidades estratigráficas Superficie, UE-6, UE-7, UE-8, UE-9 y UE-18, basada en la presencia de Acratocnus ye en estos horizontes. Mientras tanto, la presencia de Isolobodon montanus sugiere una edad mínima de 5500 ±30 BP para la unidad estratigráfica UE-4, y por último, una edad mínima de 14200 BP para las unidades estratigráficas UE-10 y UE-17 dado que se encontró Parocnus serus en esos horizontes. Sin embargo, dado que ninguno de los especímenes fechados en trabajos previos proviene de la Península de Samaná (ver Viñola-López et al., 2022:fig.1), no se debe descartar que al menos parte del material de la Cueva Funeraria de Daniel pueda representar ocurrencias mucho más recientes que deberían ser corroboradas mediante métodos de datación directa o indirecta (por ejemplo, materia orgánica o invertebrados marinos).
Estimados de tamaños de cuerpo y masa corporal
Pocos estudios han abordado el tamaño corporal y la masa de la fauna recuperada de cuevas en La Española utilizando ecuaciones de regresión (por ejemplo, Cooke y Crowley, 2018; Viñola-López et al., 2022). Por lo tanto, este resumen representa uno de los primeros intentos en explorar el tamaño corporal o la masa de múltiples taxones recuperados de dos sitios en la Península de Samaná, específicamente el Abrigo de Daniel y la Cueva Funeraria de Daniel.
Reptiles—Parte de la herpetofauna reportada include anoles y lucios, para estos se calculó la longitud corporal (longitud hocicocloaca) utilizando la fórmula y los valores de Bochaton (2016) y Bochaton y Kemp (2017), donde utilizan la longitud de la hilera dentaria con ajustes específicos para cada género (Tabla 2-1). Se identificaron anoles en el Abrigo de Daniel (unidades estratigráficas 2 y 3) y en la Cueva Funeraria de Daniel (UE-6, UE-7, Ue-9 y UE-18). La longitud de la hilera dentaria para los especímenes de las unidades UE-2 y UE-3 del Abrigo de Daniel resultaron en una longitud hocicocloaca de 133 mm y 137 mm, respectivamente (Tabla 2-1). Se estima que el espécimen de la unidad UE-6 en la Cueva Funeraria de Daniel(S-CFD-016) tiene una longitud de 165 mm, y el único espécimen de la unidad UE-7 (S-CFD-105) se estima en 107 mm de longitud hocicocloaca. Los múltiples dentarios recobrados de las unidades UE-9 y UE-18 probablemente representan individuos de múltiples especies. Los más grandes de los dentarios de las unidades UE-9 y UE-18 representan individuos con longitudes hocico-cloaca de entre 120-124 mm, mientras que el más pequeño tenía al menos 97 mm de longitud. Los especímenes más grandes están dentro del rango de tamaño reportado para fósiles de Anolis ricordii por Etheridge (1965), y podrían pertenecer a esta especie o a una especie de tamaño similar, como Anolis baleatus, que se encuentra actualmente en la zona.
Un dentario del Abrigo de Daniel (S-AD-003) identificado como Comptus cf. C. stenurus (Lucio de Cope) tiene una longitud de la hilera dentaria de 22.8 mm y una longitud total de 29.7 mm. Utilizando la fórmula de Bochaton (2016) con los valores para Pholidoscelis de Bochaton y Kemp (2017), se obtiene una longitud estimada de hocico- cloaca de 168 mm. Este estimado se encuentra dentro del rango de longitud hocico-cloaca para Comptus stenurus, lo que refuerza la asignación de este espécimen a este taxón basado en datos morfológicos.
Para la iguana rinoceronte (Cyclura cornuta), se calcularon las longitudes hocico-cloaca basadas en la altura máxima del ilión utilizando la fórmula de Bochaton (2016). Según esto, se estima que los iliones de las unidades UE-6, UE-8 y UE-18 de la Cueva Funeraria de Daniel, pertenecían a individuos con longitudes de hocico-cloaca de429 mm, 380 mm y 300 mm, respectivamente (Tabla 2-3). Estas estimaciones están dentro del rango de tamaño de Cyclura cornuta, que es más grande que otras especies conicidad de La Española, como Cyclura ricordi. Aunque Cyclura está presente en otros horizontes de la Cueva Funeraria de Daniel (UE-9 y UE-17), estos están representados por dentarios parciales o vértebras, y aunque no fue posible determinar tamaños corporales específicos, las mediciones de las vértebras (Tabla 2-2) son consistentes con adultos de Cyclura cornuta.
Las serpientes identificadas en la Cueva Funeraria de Daniel incluyen la boa de La Española (Chilabothrus striatus) y la corredora marrón de La Española (Haitiophis anomalus). Los elementos conservados (vértebras)no pueden utilizarse para estimar directamente el tamaño corporal de los individuos identificados en la fauna. Sin embargo, dado a que estas especies todavía están presentes, podemos inferir que su tamaño habría sido similar. Chilabothrus striatus es una de las boas antillanas más grandes, con longitudes corporales que alcanzan, si no superan, los dos metros (Reynolds et al., 2016). Haitiophis anomalus es la culebra más grande de La Española, con una longitud que alcanza hasta 2.7metros (Thomas et al., 2007). Para ambas especies, los especímenes identificados de la Cueva Funeraria de Daniel representan adultos completamente desarrollados y probablemente tenían al menos 1.5metros de longitud.
Se identificaron restos de tortugas terrestres (Chelonoidis) de múltiples niveles en la Cueva Funeraria de Daniel (Tablas 1-4, 1-6, 1-7, 1-9y 1-10). Sin embargo, la mayoría del material consiste en elementos incompletos de caparazón o plastrón, lo que complica las estimaciones de tamaño. Sin embargo, el epiplastrón completo de la unidad estratigráfica UE-8 y el húmero casi completo de la unidad UE-18 son similares en tamaño a los elementos correspondientes de Chelonoidis marcanoi recuperados en otros sitios de La Española (Tablas 2-5, 2-6; Turvey et al., 2017; Viñola-López y Almonte, 2022). Se han descrito caparazones y plastrones más completos de Chelonoidis marcanoi con longitud de 421 mm y 366 mm, respectivamente (Albury et al., 2018; Viñola-López y Almonte, 2022), lo que indica que la especie era relativamente grande, ya que estas dimensiones son mayores que el tamaño promedio de la tortuga de patas rojas (Chelonoidis carbonaria) y de la tortuga de patas amarillas (Chelonoidis denticulata) de América del Sur continental (Ceballos et al., 2013).
Xenartros (Perezosos Terrestres)—Además de los roedores, los perezosos terrestres son los mamíferos más comunes encontrados en la Cueva Funeraria de Daniel e incluyen al menos tres especies distintas(Tablas 1-2 a la 1-10). Sin embargo, con pocas exceptiones, la mayoría de los restos son demasiados incompletos para determinar la masa corporal de los individuos identificados. Uno de los pocos restos que permiten la estimación del tamaño corporal es el fémur referido a Parocnus serus de la unidad estratigráfica UE-10. Basado en el diámetro de la cabeza femoral, se estima que perteneció a un individuo con una masa corporal de 53 kg (basado en la fórmula de White, 1993), lo cual es similar a estimaciones previamente publicadas (Turvey y Fritz, 2011). Las otras especies de perezosos terrestres encontrados en la Cueva Funeraria de Daniel incluyen Acratocnus ye, que se estima tuvo una masa corporal de 21.31 kg, y el diminuto Neocnus toupiti con una masa corporal estimada de 7.05 kg (Turvey y Fritz, 2011). Las otras especies de Neocnus de La Española, N. comes y N. dousman son más grandes, con una masa corporal estimada de 10.46 kg y 13.02 kg, respectivamente. Una de estas especies más grandes de Neocnus sp. parece estar presente en las unidades estratigráficas UE-8, UE-10, UE-17 y UE-18, pero se necesita material más completo para determinar sus afinidades.
Roedores (Jutías y Jutías Gigantes)—Se recuperaron múltiples especies de roedores de la Cueva Funeraria de Daniel. Si bien la mayoría consiste de elementos postcraneales, los restos craneales y mandibulares pueden utilizarse para estimar la masa corporal. Específicamente, las longitudes del arco dentario mandibular y del arco dentario maxilar se utilizaron para estimar la masa corporal utilizando la fórmula de regresión para roedores histrícomorfos de Hopkins (2008). Se obtuvieron estimaciones de masa corporal para casi todas las especies de roedores identificadas (Tabla 2-21_. La única excepción fue el heteropsomino Brotomys sp. de la unidad UE-8, que está demasiado incompleto para medir. Sin embargo las estimaciones de masa corporal reportadas para Brotomys sp. oscilan entre 0.12-0.40 kg (Turvey y Fritz, 2011; Viñola-López et al., 2022). Notablemente, los heteropsominos en La Española(Brotomys spp.) y Cuba (Boromys spp.) eran relativamente pequeños en comparación con las especies de Puerto Rico (Heteropsomys spp.), que eran casi el doble de grandes, con estimaciones de masa corporal entre 0.69-0.93 kg (obs. pers.; Turvey y Fritz, 2011).
Se identificaron al menos tres especies de la jutía Plagiodontia, específicamente, Plagiodontia sp., Plagiodontia cf. P. aedium y P. araeum. Entre estas Plagiodontia sp. de las unidades estratigráficas Superficie y UE-18 tienen una masa corporal que oscila entre 2.40-2.92 kg, mientras que Plagiodontia cf. P. aedium de la unidad UE-9 tiene un rango de entre 3.92-4.05 kg (Tabla 2-21). Aunque no se recuperó ningún espécimen mandibular completo de Plagiodontia araeum, trabajos previos estiman su masa corporal entre 3.59-4.87 kg (Turvey y Fritz, 2011; Viñola-López et al., 2022). Plagiodontia spp. es el segundo roedor más grande encontrado en la Cueva Funeraria de Daniel.
Ambas especies conocidas de Isolobodon, I. montanus y I. portoricensis, se encuentran en la Cueva Funeraria de Daniel. Isolobodon montanus de las unidades UE-4 y UE-9 tiene masa corporal estimadas entre 0.78-1.73 kg, mientras que la masa corporal de Isolobodon portoricensis, de las unidades Superficie, UE-4, UE-8 y UE-18, oscila entre 1.14-2.07kg (Tabla 2-21). Nuestra muestra sugiere que I. montanus tenía una masa corporal más pequeña que I. portoricensis, lo cual contrasta con la muestra de Viñola-López et al. (2022) donde ambas especies eran más similares.
El capromíino (jutías) más común en toda la Cueva Funeraria de Daniel fue la especie extinta Hexolobodon phenax, siendo representado por múltiples especímenes de casi todas las unidades, con la excepción de UE-7. Los especímenes de Hexolobodon representan desde juveniles hasta adultos mayores, y tienen una masa corporal que oscila entre 2.07-3.17 kg (Tabla 2-21). Estos valores son consistentes con los reportados por Viñola-López et al. (2022). Hexolobodon es el tercer roedor más grande encontrado en la Cueva Funeraria de Daniel, y su relativa abundancia sugiere que era una presa preferida.
Los roedores heptaxodóntidos (‘jutías gigantes”) están representados en la fauna de La Cueva Funeraria de Daniel por Quemisia gravis. Aunque fue una de las especies de roedores más comúnmente identificadas, solo se encontró una mandíbula lo suficientemente completa como para permitir la estimación de su masa corporal. El espécimen de la unidad UE-9, perteneciente a un individuo juvenil, tiene una masa corporal estimada de 3.3 kg (Tabla 2-21). Esto es menor que las pocas otras estimaciones publicadas de 4.17 kg (Turvey and Fritz, 2011)y 9.91 kg (Viñola-López et al., 2022), pero debemos tener en cuenta que pertenece a un juvenil en el que aún no había erupcionado el m3, otros dientes y restos postcraneales indican la presencia de individuos adultos en diferentes horizontes en la Cueva Funeraria de Daniel.
Solenodóntidos (Solenodontes y Musarañas Antillanas)—Los solenodóntidos están representados por Solenodon paradoxus y Nesophontes sp. (Tablas 1-1, 1-4, 1-6 y 1-9). El espécimen de Solenodon de la unidad UE-3 en el Abrigo de Daniel tiene una masa corporal estimada de 1kg, basado en la fórmula de Bloch et al. (1998), que utiliza el tamaño del M1. Esto es consistente con la masa corporal de esta especie, la cual aún se puede encontrar en la región de Samaná (Ottenwalder, 2001). Los especímenes identificados como Nesophontes sp. Consisten de elementos postcraneales de las unidades UE-6 y UE-8 en la Cueva Funeraria de Daniel (Tablas 1-4 y 1-6). Los Nesophontes spp. de La Española son mucho más pequeños que sus contrapartes de Puerto Rico, con estimaciones publicadas de masa corporal que van desde 0.01-0.04 kg (for N. zamicrus, N. paramicrus y N. hypomicrus de La Española) en contraste con el estimado de 0.13 kg para N. edithae (Puerto Rico).
Primates (Monos Antillanos)—El mono de La Española Antillothrix bernensis se ha documentado de varias unidades en la Cueva Funeraria de Daniel, específicamente de las unidades UE-4, UE-7 y UE-9 (Tablas1-5, 1-7). Aunque hay varios elementos postcraneales parciales, solo el maxilar de la unidad UE-4 permite estimar la masa corporal. Utilizando la longitud y anchura de los dientes postcaninos preservados (Tabla2-25) y la fórmula de regresión de Gingerich et al. (1982:tabla 3), la masa corporal estimada es de 4.8 kg, lo cual es menor que las estimaciones previas basadas en materla craneal más completo (Halenar et al., 2017), pero similar a las estimaciones basadas en material postcraneal o dientes inferiores (MacPhee y Meldrum, 2006; Rosenberger et al., 2011). Esta masa corporal se encuentra dentro del rango de otros primates de las Antillas mayores, con la excepción de Paralouatta varonai de Cuba, que era más grande (Cooke et al., 2011:tabla 2).
Distribución de la fauna de vertebrados
Abrigo de Daniel—Los pocos vertebrados identificados en el Abrigo de Daniel representan especies actuales (Tabla 1-1). Estos incluyen lagartijas (Anolis sp.) y el Lucio de Cope (Comptus cf. C. stenurus), ambos son reptiles relativamente pequeños, con longitudes estimadas de hocico-cloaca de 133 mm y 169 mm, respectivamente. Ambos taxones se encuentran actualmente en la región y han sido documentados previamente en la literatura en sitios Cuaternarios en el oeste de la República Dominicana (Etheridge, 1965). Los mamíferos del Abrigo de Daniel están representados por restos postcraneales de roedores capromíinos que probablemente representan Plagiodontia sp. u otra especie de tamaño similar. Aunque la hutía de La Española (Plagiodontia aedium) es el único miembro existente de este género, se conocen al menos otras cuatro especies extintas de diversas localidades en la isla. Entre estas, solo Plagiodontia ipnaeum ha sido fechada directamente con una última fecha de ocurrencia de 490 ± 30 BP (Viñola-López et al., 2022). El otro mamífero presente en el Abrigo de Daniel es el solenodonte de La Española (Solenodon paradoxus), cuyo rango actual incluye Samaná. Una segunda especie más pequeña de solenodonte, Solenodon marcanoi, se conoce de depósitos en cuevas en la península de Tiburón en Haití y de Rancho La Guardia, en la República Dominicana (Patterson, 1962; Woods, 1989; Ottenwalder, 2001), y puede haber estado restringida a esa región.
Cueva Funeraria de Daniel—Se analizaron numerosos huesos de múltiples niveles en este sitio, totalizando más de 3300 elementos en diferentes grados de completitud y representando un ensamblaje relativamente diverso (Tablas 1-2 to 1-10). La herpetofauna está representada en su mayoría por especies existentes cuya distribución actual incluye la Península de Samaná. Esta incluye al menos dos especies de anoles (Anolis spp.), la boa de La Española (Chilabothrus striatus), la corredora marrón de La Española (Haitiophis anomalus), la iguana rinoceronte de La Española (Cyclura cornuta) y la extinta, tortuga de Marcano (Chelonoidis marcanoi). La presencia de Chelonoidis marcanoi en la Cueva Funeraria de Daniel representa una ampliación del rango de la especie, que solamente se había reportado de las provincias de Pedernales y Altagracia (Viñola-López and Almonte, 2022).
Al menos cuatro especies de perezosos se encuentra en la Cueva Funeraria de Daniel (Tablas 1-2, 1-4, 1-5, 1-6, 1-7, 1-8, 1-9, 1-10), siendo la única excepción el nivel UE-4 que no contenía material identificable como xenartros. Acratocnus ye fue el taxón más común, identificado en casi todos los niveles, representando aproximadamente 11 individuos. Mientras tanto, Parocnus serus, que es el segundo perezoso más grande de toda La Española, se encontró en los niveles UE-10 y UE-17, representando al menos dos individuos. Los huesos identificados como Neocnus sp. ó Neocnus toupiti representan los restos de perezosos más comunes después de Acratocnus ye, fueron identificados en los niveles Superficie, UE-8, UE-9, UE-10, UE-17, y UE-18, representando al menos seis individuos. En total se conocen hasta ocho especies de perezosos en depósitos Cuaternarios de La Española, los cuales van desde el grande Megalocnus zile hasta el diminuto Neocnus toupiti (Miller, 1929a; MacPhee et al., 2000; White y MacPhee, 2001; Rega et al., 2002; McAfee et al.,2021). Al igual que muchas otras especies extintas reportadas aquí, los perezosos terrestres identificados de la Cueva Funeraria de Daniel representan nuevos registros de distribución.
Un total de siete especies de roedores han sido identificados en la Cueva Funeraria de Daniel. De estos hay al menos dos especies de Plagiodontia, incluyendo registro de la especie Plagiodontia aedium en las unidades UE-6 y UE-9, y la especie extinta Plagiodontia araeum la cual se distingue por su gran tamaño en la unidad UE-9. Con la excepción de la unidad UE-7, la especie de roedor más común identificada a partir de restos craneales/mandibulares a lo largo de todos los demás horizontes estratigráficos en la Cueva Funeraria de Daniel es Hexolobodon phenax (Tablas 1-2 a la 1-10). Esto contrasta notablemente con las observaciones hechas por otros investigadores que consideran a Isolobodon portoricensis y a Brotomys sp. como los taxones más abundantes encontrados en contexto arqueológicos en La Española, incluyendo otros sitios en la península de Samaná, como Anadel y Río San Juan (Miller, 1929b; Cooke et al., 2017; Viñola-López et al., 2022; Shev et al., 2023). Sin embargo, Isolobodon portoricensis fue el segundo roedor más común en la Cueva Funeraria de Daniel, encontrado en las unidades Superficie, UE-4, UE-8, UE-9 y UE-18. Mientras tanto, Isolobodon montanus fue menos común, pero aún se encontró en varios niveles, incluyendo algunos en asociación con I. portoricensis. El roedor caviomorfo más grande de La Española, Quemisia gravis, fue el tercer taxón de roedor más común identificado, encontrado en los niveles Superficie, UE-6, UE-7, UE-9, UE-17 y UE-18, mientras que el heteropsomíino Brotomys sp. Fue el más raro, conocido solo por un espécimen del nivel UE-8. En general, los datos de la Cueva Funeraria de Daniel sugieren que Hexolobodon phenax (MNI 29) es la especie más común, seguida por Isolobodon portoricensis (MNI 9) y Quemisia gravis (MNI 8), mientras que la unidad UE-9 tiene el mayor número total de especies e individuos (Tabla 1-7). Trabajos previos en la Península de Samaná habían identificado a Brotomys voratus, Isolobodon portoricensis y a Plagiodontia aedium, específicamente en los sitios de Rio San Juan y Anadel(Miller, 1929b). La presencia de Plagiodontia araeum, Hexolobodon phenax, Isolobodon montanus y Quemisia gravis en la Cueva Funeraria de Daniel son entonces nuevos registros regionales, ampliando así la distribución de geográfica de estos taxones.
Los solenodóntidos, representados por solenodon y musarañas antillanas, son algunos de los mamíferos menos comunes en la Cueva Funeraria de Daniel. Solenodon paradoxus, una especie existente que todavía se encuentra en La Española (Ottenwalder, 2001), fue identificada en las unidades UE-6, UE-8 y UE-17, mientras que la diminuta Nesophontes sp. se identificó de las unidades UE-6 y UE-8 (Tablas 1-4, 1-6y 1-9). Solenodon paradoxus fue reportado previamente en la localidad de Río San Juan (Miller, 1929b), mientras que Nesophontes sp. representa un nuevo registro para la región.
Los primates también fueron relativamente raros, solo representados por Antillothrix bernensis encontrado en las unidades UE-4, UE-7y UE-9 (Tablas 1-3, 1-5 y 1-7). La presencia de Antillothrix en la Cueva Funeraria de Daniel es el primer registro inequívoco para la región de Samaná, y sugiere una distribución más amplia para la especie, que de otro modo se conoce en ele suroeste de la República Dominicana(Cooke et al., 2011:fig.1). Algunos de los registros de la Cueva Funeraria de Daniel incluyen elementos postcraneales que, dada la ausencia de otros taxones de primates en la República Dominicana, se han asignado a A. bernensis. Un registro previo de la costa sur de la bahía de Samaná ha sido asignado tentativamente a este taxón (Miller, 1929b; Ford, 1986; MacPhee y Meldrum, 2006).
Tafonomía de la Cueva Funeraria de Daniel
Se colectaron varios miles de huesos de un total de nueve unidades estratigráficas en la Cueva Funeraria de Daniel, todos ellos representando taxones endémicos que aún están presentes o se extinguieron durante los más recientes miles a cientos de años. La gran mayoría de los huesos consisten principalmente de elementos craneales y postcraneales de roedores caviomorfos, siendo el taxón más común identificado según restos craneales/mandibulares y dentales Hexolo-bodon phenax (Tablas 1-2 a la 1-10). Se sugieren dos escenarios posibles para la acumulación de huesos en la Cueva Funeraria de Daniel. El primer escenario es que representan acumulaciones de egagrópilas de búhos, que son una fuente conocida e importante de acumulaciones de huesos en abrigos, cuevas y sitios arqueológicos en todo el mundo, y usualmente son ricas en vertebrados pequeños (e.g., Dodson y Wexlar,1979; Kusmer, 1990; Comay y Dayan, 2018). Considerando el conjunto completo, muchas características de la fauna recuperada en la Cueva Funeraria de Daniel sugieren este tipo de deposición. Por ejemplo, el número relativamente alto de restos de roedores de una rango de tamaño similar (y la rareza de especies más grandes, >4 kg) se puede interpretar como una representación de la presa o tamaño de presa preferida de las especies de búho en lugar de ser el resultado de la abundancia local de una especie (Kusmer, 1990; Yom-Tov y Wool, 1997). Otros aspectos como el alto número de mandíbulas con la región articular dañada o faltante, alta frecuencia de húmeros, fémures y tibias, alto número de individuos inmaduros en algunas unidades (i.e. UE-7)podrían apoyar esta interpretación (Dodson y Wexlar, 1979; Kusmer,1990). Los vertebrados más grandes, como Parocnus serus, son raros, pero también lo son algunos de los mamíferos más pequeños (i.e., Brotomys sp. y Nesophontes sp.) y las aves. Uno de los pocos huesos de ave (S-CFD-096) colectados se identifica como Tyto sp. (lechuza). Los huesos de Tyto spp. y otras especies de búhos y lechuzas se han encontrado en depósitos de cuevas cuaternarias en todo el Caribe, e incluye varias especies extintas, se cree que son responsables de la acumulación de huesos en cuevas y abrigos (Pregill y Olson, 1981; Jiménez Vázquez et al., 2005; Steadman y Takano, 2013; Suarez y Olson, 2015, 2020). Por ejemplo, algunas cuevas bien conocidas de Puerto Rico, como la Cueva Clara de Anthony, tienen un conjunto diverso de mamíferos, reptiles, anfibios y aves, incluyendo tres especies de búho, Tyto glaucops, Athene cunicularia y Gymnasio nudipes (Anthony, 1918; Wetmore, 1920,1922a; Olson, 1976b; Pregill, 1981; McFarlane, 1999; observaciones personales). Sin embargo, la Cueva Funeraria de Daniel se destaca por la escasez de mamíferos pequeños (heteropsomíinos, nesofóntidos y murciélagos), aves y reptiles, y la ausencia de anfibios, contrastando con otros depósitos en Cuba, La Española, Puerto Rico y otros lugares en el Caribe que se han interpretado o se sabe que se formaron como resultado de la acumulación de egagrópilas de búhos (e.g. Buden,1974; Pregill y Olson, 1981; Jiménez Vázquez et al., 2005; Steadman y Takano, 2013).
El segundo escenario, es que los restos faunísticos encontrados en la Cueva Funeraria de Daniel representan, al menos en parte, el resultado de la acumulación de restos descartados por los habitantes precolombinos del área. Este escenario podría explicar la escasez de vertebrados pequeños y la presencia de especies más grandes como la iguana rinoceronte (Cyclura cornuta), las tortugas (Chelonoidis marcanoi) y especies más grandes de perezosos (Acratocnus y Parocnus), que habrían sido demasiado grandes para ser presa de los búhos. Más interesantemente, esto podría explicar la abundancia de algunas especies de roedores, como Hexolobodon phenax, en horizontes como UE-9 (Tabla1-7). Aunque esta especie está documentada en muchos sitios de La Española, se considera rara (Cooke y Crowley, 2018). Esto implicaría que Hexolobodon phenax era un alimento preferido por los habitantes de la zona adyacente a la Cueva Funeraria de Daniel. Esto contrastería con otros depósitos culturales más jóvenes en la Península de Samaná(i.e. Anadel y Rio San Juan) y en otros lugares de la República Dominicana (e.g. El Flaco) donde Isolobodon portoricensis y Brotomys sp. Son las especies de roedores más comunes (Miller, 1929b; Shev et al., 2023). Aunque los huesos carecen de descoloración que sugiera cocción sobre una llama abierta, esto podría indicar el uso de otros métodos de cocción (Cooke y Crowley, 2018). Una forma posible de probar esta hipótesis sería realizar análisis isotópicos de los dientes de Hexolobodon phenax y otras especies de roedores a lo largo de diferentes horizontes en la Cueva Funeraria de Daniel. Los valores de isótopos de carbono y nitrógeno pueden utilizarse para determinar si las especies consumían de manera oportunista (o eran alimentadas intencionalmente) plantas domestivadas, lo que sugeriría que su proximidad a áreas cultivadas las hacía presas relativamente fáciles (Shev y Laffoon, 2022; Shev et al., 2021, 2023). Una posible explicación para las diferencias en la preferencia de especies de roedores como presa entre culturas más antiguas y otras más jóvenes en La Española podría estar relacionado a la extinción asíncrona de las distintas especies. Hexolobodon phenax parece ser una de las primeras especies en extinguirse ya que la fecha de su última aparición conocida es de 1080 ± 30 BP, en comparación con las fechas más jóvenes para Isolobodon portoricensis (710 ± 50 BP) y Brotomys voratus (430 ±60 BP) (McFarlane et al., 2000; Viñola-López et al., 2022). Aunque todo esto podría cambiar con fechamiento directo de especímenes de la Cueva Funeraria de Daniel u otros sitios en la zona.
Los especímenes de algunos niveles, específicamente las unidades UE-4, UE-7, UE-9, y UE-18, muestran icnofósiles con características similares a los producidos por avispas solitarias que anidan en el suelo(Hasiotis, 2003). En la actualidad se observó en el suelo de la Cueva Funeraria de Daniel avispas solitarias que anidan en el suelo (Pompilidae, Pepsinae) pertenecientes al género Priocnessus ó Priocnemis(Waichert et al., 2012). La presencia de estructuras de anidación en algunos de los huesos de las unidades mencionadas sugiere el uso repetitivo de la cueva por las avispas posterior a la deposición de cada uno de estos horizontes.
Conclusiones
Informes previos de sitios a lo largo de las costas norte y sur de la Bahía de Samaná tienen faunas de vertebrados similares, pero menos diversos que la aquí reportada (e.g. Miller, 1929b). En comparación, la fauna, especialmente en la Cueva Funeraria de Daniel, incluye representantes de todos los grupos de mamíferos endémicos (no voladores) conocidos de La Española, específicamente primate, solenodontes y múltiples especies de roedores caviomorfos, además de tortugas e iguanas rinoceronte, muchas de las cuales no habían sido documentadas previamente para esta región. La fauna también incluye algunas especies endémicas actuales, como la boa de La Española, la corredora marrón de La Española, la iguana rinoceronte de La Española, el solenodon y jutía de La Española, que se sabe que todavía ocurren en la península. Algunos mamíferos extintos relativamente raros encontrados en la Cueva Funeraria de Daniel que se destacan incluyen los perezosos Parocnus serus, Neocnus spp., el roedor capromíino Hexolobodon phenax, el roedor heptaxodóntido Quemisia gravis y el primate Antillothrix bernensis. Tanto como para Parocnus como Neocnus, su presencia en la Cueva Funeraria de Daniel representa una extensión de su distribución, especialmente para el diminuto perezoso arbóreo, Neocnus toupiti, que fue descrito originalmente de Haití (MacPhee et al., 2000). Algunos de los especímenes identificados como Neocnus sp. sugiere la presencia de una segunda especie, emulando otros sitios en el país donde varias especies de este género coexisten (MacPhee et al., 2000). Los especímenes identificados como Quemisia gravis aportan nueva información sustancial sobre la morfología craneal y postcraneal de esta especie. Los húmeros y fémures atribuidos a Quemisia muestran caracteres únicos que sugieren capacidades locomotoras diferentes de otros caviomorfos de La Española, y justifican un estudio más detallado. Además, un análisis filogenético preliminar confirma que Quemisia es un heptaxodóntido, estrechamente relacionado con Elasmodontomys obliquus y Amblyrhiza inundata. De manera similar, los especímenes identificados como Antillothrix bernensis proporcionan nuevos datos sobre su morfología postcraneal y confirman la presencia de este taxón en la región de Samaná. Los elementos postcraneales de Antillothris sugieren que era un cuadrúpedo arbóreo que tenía hábitos más semiterrestres que algunos de los otros platirrhinos antillanos.
Por último, la fauna de la Cueva Funeraria de Daniel se destaca por la abundancia del roedor capromíino extinto Hexolobodon phenax en la mayoría de los horizontes. Esto, junto con la presencia coetánea de vertebrados más grandes (perezosos, tortugas, iguanas rinocerontes)y la ausencia o rareza de mamíferos más pequeños, aves y reptiles, parece sugerir que Hexolobodon era una presa preferida de los habitantes precolombinos del área. Esto contrasta con otras culturas cronológicamente más jóvenes en La Española que parecen haber preferido otras especies de roedores, principalmente Isolobodon portoricensis y Brotomys sp. Esto plantea la cuestión de si estas diferencias están relacionadas con la abundancia local o la extinción de Hexolobodon previo a otras especies de roedores. La confirmación de este postulado requiere de análisis más extensos, incluyendo fechamiento directo de los huesos y/o análisis isotópicos.
Bibliografía
Albury, N. A., R. Franz, R. Rimoli, P. Lehman, and A. L. Rosenberger. 2018. Fossil land tortoises (Testudines: Testudinidae) from the Dominican Republic, West Indies, with a description of a new species. American Museum Novitates 3904:1–28.
Allen, J. A. 1916. An extinct octodont from the island of Porto Rico, West Indies. Annals of the New York Academy of Sciences 27:17–22.
Amson, E., C. Argot, H. G. McDonald, and C. de Muizon. 2015. Osteology and functional morphology of the forelimb of the marine sloth Thalassocnus (Mammalia, Tardigrada). Journal of Mammalian Evolution 22:169–242.
Anthony, H. E. 1918. The indigenous land mammals of Porto Rico, living and extinct. Memoirs of the American Museum of Natural History 2:331–435.
Anthony, H. E. 1920. New mammals from Jamaica. Bulletin of the American Museum of Natural History 42:469–475.
Aranda, E., L. W. Viñola-López, and L. Álvarez-Lajonchere. 2020. New insights on the Quaternary fossil record of Isla de la Juventud, Cuba. Journal of South American Earth Sciences 102:102656.
Bloch, J. I., K. D. Rose, and P. D. Gingerich. 1998. New species of Batodonoides (Lipotyphla, Geolabididae) from the early Eocene of Wyoming: smallest known mammal? Journal of Mammalogy 79(3):804–827.
Bochaton, C. 2016. Describing archaeological Iguana Laurenti, 1768 (Squamata: Iguanidae) populations: size and skeletal maturity. International Journal of Osteoarchaeology 26:716–724.
Bochaton, C., and M. E. Kemp. 2017. Reconstructing the body sizes of Quaternary lizards using Pholidoscelis Fitzinger, 1843, and Anolis Daudin, 1802, as case studies. Journal of Vertebrate Paleontology 37(1):e1239626.
Bochaton, C., R. Boistel, F. Casagrande, S. Grouard, and S. Bailon. 2016. A fossil Diploglossus (Squamata, Anguidae) lizard from Basse-Terre and Grande-Terre Islands (Guadeloupe, French West Indies). Scientific Reports 6:28475.
Buden, D. W. 1974. Prey remains of barn owls in the southern Bahama Islands. The Wilson Bulletin 86(4):336–343.
Ceballos, C. P., D. C. Adams, J. B. Iverson, and N. Valenzuela. 2013. Phylogenetic patterns of sexual dimorphism in turtles and their implications for Rensch’s Rule. Evolutionary Biology 40:194–208.
Comay, O., and T. Dayan. 2018. Taphonomic signatures of owls: new insights into micromammal assemblages. Palaeogeography, Palaeoclimatology, Palaeoecology 492:81–91.
Cooke, S. B., and B. E. Crowley. 2018. Deciphering the isotopic niches of now-extinct Hispaniola rodents. Journal of Vertebrate Paleontology 38:e1510414.
Cooke, S. B., and M. Tallman. 2012. New endemic platyrrhine femur from Haiti: description and locomotor analysis. Journal of Human Evolution 63:560–567.
Cooke, S. B., A. L. Rosenberger, and S. Turvey. 2011. An extinct monkey from Haiti and the origins of the Greater Antillean primates. Proceedings of the National Academy of Sciences 108(7):2699–2704.
Cooke, S. B., L. M. Dávalos, A. M. Mychajliw, S. T. Turvey, and N. S. Upham. 2017. Anthropogenic extinction dominates Holocene declines of West Indian Mammals. Annual Review of Ecology, Evolution, and Systematics 48:301–327.
Da Cunha, L., L. W. Viñola-López, R. D. E. MacPhee, L. Kerber, J. Vélez-Juarbe, P.-O. Antoine, M. Boivin, L. Hautier, R. Lebrun, L. Marivaux, and P.-H. Fabre. 2023. The inner ear of caviomorph rodents: phylogenetic implications and application to extinct West Indian taxa. Journal of Mammalian Evolution 30:1155–1176.
Delsuc, F., M. Kuch, G. C. Gibb, E. Karpinski, D. Hackenberger, P. Szpak, J. G. Mart´ˆnez, J. I. Mead, H. G. McDonald, R. D. E. MacPhee, G. Billet, L. Hautier, and H. Poinar. 2019. Ancient mitogenomes reveal the evolutionary history and biogeography of sloths. Current Biology 29:2031–2042.
Dodson, P., and D. Wexlar. 1979. Taphonomic investigations of owl pellets. Paleobiology 5(3):275–284.
Etheridge, R. 1965. Fossil lizards from the Dominican Republic. Quarterly Journal of the Florida Academy of Sciences 28:83–105.
Ford, S. M. 1986. Subfossil platyrrhine tibia (Primates: Callitrichidae) from Hispaniola: a possible further example of island gigantism. American Journal of Physical Anthropology 70:47–62.
Franz, R., and S. E. Franz. 2009. A new fossil land tortoise in the genus Chelonoidis (Testudines: Testudinidae) from the northern Bahamas, with an osteological assessment of other neotropical tortoises. Bulletin of the Florida Museum of Natural History 49(1):1–44.
Franz, R., and C. A. Woods. 1983. A fossil tortoise from Hispaniola. Journal of Herpetology 17(1):79–81.
Gingerich, P. D., B. H. Smith, and K. Rosenberg. 1982. Allometric scaling in the dentition of primates and prediction of body weight from tooth size in fossils. American Journal of Physical Anthropology 58:81–100.
Halenar, L. B., S. B. Cooke, A. L. Rosenberger, and R. Rímoli. 2017. New cranium of the endemic Caribbean platyrrhine, Antillothrix bernensis, from La Altagracia Province, Dominican Republic. Journal of Human Evolution 106:133-153.
Hansford, J., J. M. Nuñez-Miño, R. P. Young, S. Brace, J. L. Brocca, and S. T. Turvey. 2012. Taxonomy-testing and the ‘Goldilocks Hypothesis’: morphometric analysis of species diversity in living and extinct Hispaniolan hutias. Systematics and Biodiversity 10(4):491-507.
Hasiotis, S. T. 2003. Complex ichnofossils of solitary and social soil organisms: understanding their evolution and roles in terrestrial paleoecosystems. Palaeogeography, Palaeoclimatology, Palaeoecology 192:259–320.
Hedges, S. B., R. Powell, R. W. Henderson, S. Hanson, and J. C. Murphy. 2019. Definition of the Caribbean islands biogeographic region, with checklist and recommendations for standardized common names of amphibians and reptiles. Caribbean Herpetology 67:1-53.
Hopkins, S. S. 2008. Reassessing the mass of exceptionally large rodents using toothrow length and area as proxies for body mass. Journal of Mammalogy 89:232–243.
Jiménez Vázquez, O., M. M. Condis, E. García Cancio. 2005. Vertebrados post-glaciales en un residuario fósil de Tyto alba scopoli (Aves: tytonidae) en el occidente de Cuba. Revista Mexicana de Mastozoología 9:85-112.
Johnson, D. H. 1948. A rediscovered Haitian rodent, Plagiodontia aedium, with a synopsis of related species. Proceedings of the Biological Society of Washington 61:69-76.
Kay, R. F., K. D. Hunt, C. D. Beeker, G. W. Conrad, C. C. Johnson, and J. Keller. 2011. Preliminary notes on a newly discovered skull of the extinct monkey Antillothrix from Hispaniola and the origin of the Greater Antillean monkeys. Journal of Human Evolution 60:124–128.
Kehlmaier, C., N. A. Albury, D. W. Steadman, E. Gracia, R. Franz, and U. Fritz. 2021. Ancient mitogenomics elucidates diversity of extinct West Indian tortoises. Scientific Reports 11:3224.
Kusmer, K. D. 1990. Taphonomy of owl pellet deposition. Journal of Paleontology 64(4):629-637.
MacPhee, R. D. E., and C. Flemming. 1999. Requiem Aeternam: The Last Five Hundred Years of Mammalian Species Extinctions; pp. 333–371 in R. D. E. MacPhee (ed.), Extinctions in Near Time. Kluwer Academic/ Plenum Publishers, New York.
MacPhee, R. D. E., and C. Flemming. 2003. A possible heptaxodontine and other caviidan rodents from the Quaternary of Jamaica. American Museum Novitates 3422:1-42.
MacPhee, R. D. E., and D. A. Grimaldi. 1996. Mammal bones in Dominican amber. Nature 380:489–490.
MacPhee, R. D. E., and J. Meldrum. 2006. Postcranial remains of the extinct monkeys of the Greater Antilles, with evidence for semiterrestriality in Parallouatta. American Museum Novitates 3516:1-65.
MacPhee, R. D. E., J. L. White, and C. A. Woods. 2000. New megalonychid sloths (Phyllophaga, Xenarthra) from the Quaternary of Hispaniola. American Museum Novitates 3303:1-32.
MacPhee, R. D. E., I. Horovitz, O. Arredondo, and O. Jiménez Vasquez. 1995. A new genus for the extinct Hispaniolan monkey Saimiri bernensis Rímoli, 1977, with notes on its systematic position. American Museum Novitates 3134:1-21.
Marivaux, L., L. W. Viñola-López, M. Boivin, L. Da Cunha, P.-H. Fabre, R. Joannes-Boyau, G. Maincent, P. Münch, N. S. Stutz, J. Vélez-Juarbe, and P.-O. Antoine. 2022. Incisor enamel microstructure of West Indian caviomorph hystricognathous rodents (Octodontoidea and Chinchilloidea). Journal of Mammalian Evolution 29:969–995.
Marivaux, L., J. Vélez-Juarbe, G. Merzeraud, F. Pujos, L. W. Viñola-López, M. Boivin, H. Santos-Mercado, E. J. Cruz, A. Grajales, J. Padilla, K. I. VélezRosado, M. Philippon, J.-L. Léticée, P. Münch, and P.-O. Antoine. 2020. Early Oligocene chinchilloid caviomorphs from Puerto Rico and the initial rodent colonization of the West Indies. Proceedings of the Royal Society B 287:20192806.
McAfee, R. K., S. M. Beery, R. Rimoli, J. Almonte, P. Lehman, and S. B. Cooke. 2021. New species of the ground sloth Parocnus from the late Pleistocene- early Holocene of Hispaniola. Vertebrate Anatomy Morphology Palaeontology 9:52-82.
McFarlane, D. A. 1999. Late Quaternary fossil mammals and last occurrence dates from caves at Barahona, Puerto Rico. Caribbean Journal of Science 35(3-4):238-248.
McFarlane, D. A., A. Vale, K. Christenson, J. Lundberg, G. Atilles, and S.-E. Lauritzen. 2000. New specimens of late Quaternary extinct mammals from caves in Sanchez Ramirez Province, Dominican Republic. Caribbean Journal of Science 36(1-2):163-166.
Meldrum, D. J., J. G. Fleagle, and R. F. Kay. 1990. Partial humeri of two Miocene Colombian primates. American Journal of Physical Anthropology 81:413-422.
Miller, Jr., G. S. 1916. Bones of mammals from indian sites in Cuba and Santo Domingo. Smithsonian Miscellaneous Collections 66(12):1-10.
Miller, Jr., G. S. 1922. Remains of mammals from caves in the Republic of Haiti. Smithsonian Miscellaneous Collections 74(3):1–8.
Miller, Jr., G. S. 1929a. A second collection of mammals from caves near St. Michel, Haiti. Smithsonian Miscellaneous Collections 81(9):1-30.
Miller, Jr., G. S. 1929b. Mammals eaten by indians, owls, and Spaniards in the coast region of the Dominican Republic. Smithsonian Miscellaneous Collections 82(5):1–16.
Olson, S. L. 1974. A new species of Nesotrochis from Hispaniola, with notes on other fossil rails from the West Indies (Aves: Rallidae). Proceedings of the Biological Society of Washington 87(38):439–450.
Olson, S. L. 1976a. A new species of Milvago from Hispaniola, with notes on other fossil caracaras from the West Indies (Aves: Falconidae). Proceedings of the Biological Society of Washington 88(33):355–366.
Olson, S. L. 1976b. Fossil woodcocks: an extinct species from Puerto Rico and an invalid species from Malta (Aves: Scolopacidae: Scolopax). Proceedings of the Biological Society of Washington 89(20):265–274.
Oswald, J. A., R. S. Terrill, B. J. Stucky, M. J. LeFebvre, D. W. Steadman, R. P. Guralnick, and J. M. Allen. 2021. Ancient DNA from the extinct Haitian cave-rail (Nesotrochis steganinos) suggests a biogeographic connection between the Caribbean and Old World. Biology Letters 17:20200760.
Ottenwalder, J. 2001. Systematics and biogeography of the West Indian genus Solenodon, p. 253–329. In C. A. Woods, and F. E. Sergile (eds.), Biogeography of the West Indies: Patterns and Perspectives, 2nd Ed. CRC Press, Boca Raton.
Patterson, B. 1962. An extinct solenodontid insectivore from Hispaniola. Breviora 165:1–11.
Pregill, G. 1981. Late Pleistocene herpetofaunas from Puerto Rico. The University of Kansas Museum of Natural History Miscellaneous Publication 71:1–72.
Pregill, G. K., and S. L. Olson. 1981. Zoogeography of West Indian vertebrates in relation to Pleistocene Climatic cycles. Annual Review of Ecology and Systematics 12:75–98.
Presslee, S., G. J. Slater, F. Pujos, A. M. Forasiepi, R. Fischer, K. Molloy, M. Mackie, J. V. Olsen, A. Kramarz, M. Taglioretti, F. Scaglia, M. Lezcano, J. L. Lanata, J. Southon, R. Feranec, J. Bloch, A. Hajduk, F. M. Martin, R. Salas Gismondi, M. Reguero, C. de Muizon, A. Greenwood, B. T. Chait, K. Penkman, M. Collins, and R. D. E. MacPhee. 2019. Paleoproteomics resolve sloth relationships. Nature Ecology and Evolution 3:1121–1130.
Ray, C. E. 1964a. A new capromyid rodent from the Quaternary of Hispaniola. Breviora 203:1–4.
Ray, C. E. 1964b. The taxonomic status of Heptaxodon and dental ontogeny in Elasmodontomys and Amblyrhiza (Rodentia: Caviomorpha). Bulletin of the Museum of Comparative Zoology 131(5):107–127.
Ray, C. E. 1965. The relationships of Quemisia gravis (Rodentia: ? Heptaxodon-tidae). Smithsonian Miscellanous Collections 149(3):1–12.
Rega, E., D. A. McFarlane, J. Lundberg, and K. Christenson. 2002. A new megalonychid sloth from the late Wisconsinan of the Dominican Republic. Caribbean Journal of Science 38(1–2):11–19.
Reynolds, R. G., D. C. Collar, S. A. Pasachnik, M. L. Niemiller, A. R. PuenteRolón, and L. J. Revell. 2016. Ecological specialization and morphological diversification in Greater Antillean boas. Evolution 70(8):1882–1895.
Rímoli, R. 1977. Una nueva especie de monos (Cebidae: Saimirinae: Saimiri) de la Hispaniola. Cuaderno del Cendia, Universidad Autónoma de Santo Domingo 242:5–14.
Roca, A. L., G. K. Bar-Gal, E. Eizirik, K. M. Helgen, R. Maria, M. S. Springer, S. J. O’Brien, and W. J. Murphy. 2004. Mesozoic origin for West Indian insectivores. Nature 429:649–651.
Rosenberger, A. L., S. B. Cooke, R. Rímoli, X. Ni, and L. Cardoso. 2011. First skull of Antillothrix bernensis, an extinct relict monkey from the Dominican Republic. Proceedings of the Royal Society B 278:67–74.
Schools, M., and S. B. Hedges. 2021. Phylogenetics, classification, and biogeography of the Neotropical forest lizards (Squamata, Doploglossidae). Zootaxa 4974:201–257.
Schwartz, A. 1970. A new species of large Diploglossus (Sauria: Anguidae) from Hispaniola. Proceedings of the Biological Society of Washington 82:777–788.
Shev, G. T., and J. E. Laffoon. 2022. Paleodietary reconstruction of endemic rodents from the precolumbian Dominican Republic: discriminating wild feeding behavior from diets linked to human niche construction activities. International Journal of Osteoarchaeology 32:976–995.
Shev, G. T., J. E. Laffoon, and C. L. Hofman. 2021. Human and hutia (Isolobodon portoricensis) interactions in pre-Columbian Hispaniola: the isotopic and morphological evidence. Journal of Archaeological Science: Reports 37:102913.
Shev, G. T., Z. Ali, J. N. Almonte Milan, S. Casale, I. Djakovic, and C. L. Hofman. 2023. Coastal-hinterland exchange and garden hunting practices prior to the European invasion of Hispaniola. Environmental Archaeology28(6):421–442.
Silva-Taboada, G., W. Suárez Duque, and S. Díaz-Franco. 2007. Compendio de los Mamíferos Terrestres Autóctonos de Cuba Vivientes y Extinguidos. Ediciones Boloña, La Habana, Cuba, 465 p.
Soto-Centeno, J. A., and D. W. Steadman. 2015. Fossils reject climate change as the cause of extinction of Caribbean bats. Scientific Reports 5:7971.
Steadman, D. W., and O. M. Takano. 2013. A late-Holocene bird community from Hispaniola: refining the chronology of vertebrate extinction in the West Indies. The Holocene 23(7):936–944.
Steadman, D. W., P. S. Martin, R. D. E. MacPhee, A. J. T. Jull, H. G. McDonald, C. A. Woods, M. Iturralde-Vinent, and G. W. L. Hodgins. 2005. Asynchronous extinction of late Quaternary sloths on continents and islands. Proceeding of the National Academy of Sciences 102(33):11763–11768.
Suárez, W., and S. L. Olson. 2015. Systematics and distribution of the giant fossil barn owls of the West Indies (Aves: Strigiformes: Tytonidae). Zootaxa 4020(3):533–553.
Suárez, W., and S. L. Olson. 2020. Systematics and distribution of the living and fossil small barn owls of the West Indies (Aves: Strigiformes: Tytonidae). Zootaxa 4830(3):544–564.
Syromyatnikova, E., and E. Aranda. 2023. A record of galliwasp (Diploglossidae: Diploglossus) from the Pleistocene of Cuba. Historical Biology 35(7):1069–1073.
Tallman, M., and S. B. Cooke. 2016. New endemic platyrrhine humerus from Haiti and the evolution of the Greater Antillean platyrrhines. Journal of Human Evolution 91:144–166.
Thomas, R., R. W. Henderson, R. Powell, and P. G. Rodríguez. 2007. Alsophis anomalus (Hispaniolan Brown Racer). Herpetological Review 38(3):338– 339.
Turvey, S. T., and S. A. Fritz. 2011. The ghosts of mammals past: biological and geographical patterns of global mammalian extinction across the Holocene. Philosophical Transactions of the Royal Society B 366:2564–2576.
Turvey, S. T., J. Almonte, J. Hansford, R. P. Scofield, J. I. Brocca, and S. D. Chapman. 2017. A new species of extinct Late Quaternary giant tortoise from Hispaniola. Zootaxa 4277(1):1–16.
Upham, N. S. 2017. Past and present of insular Caribbean mammals: understanding Holocene extinctions to inform modern biodiversity conservation. Journal of Mammalogy 98(4):913–917.
Vélez-Juarbe, J., T. Martin, R. D. E. MacPhee, and D. Ortega-Ariza. 2014. The earliest Caribbean rodents: Oligocene caviomorphs from Puerto Rico. Journal of Vertebrate Paleontology 34(1):157–163.
Viñola-López, L. W., and J. N. Almonte. 2022. Revision of the fossil land tortoises (Testudines: Testudinidae) from Hispaniola with the description of a new species. Novitates Caribaea 20:11–29.
Viñola-López, L. W., J. I. Bloch, J. N. Almonte Milán, and M. J. LeFebvre. 2022a. Endemic rodents of Hispaniola: biogeography and extinction timing during the Holocene. Quaternary Science Review 297:107828.
Viñola-López, L. W., E. E. Core Suárez, J. Vélez-Juarbe, J. N. Almonte Milan, J. I. Bloch. 2022b. The oldest known record of a ground sloth (Mammalia, Xenartha, Folivora) from Hispaniola: evolutionary and paleobiogeographical implications. Journal of Paleontology 96(3):684–691.
Waichert, C., J. Rodriguez, C. D. Von Dohlen, and J. P. Pitts. 2012. Spider wasps (Hymenoptera: Pompolidae) of the Dominican Republic. Zootaxa 3353:1–47.
Wetmore, A. 1920. Five new species of birds from cave deposits in Porto Rico. Proceedings of the Biological Society of Washington 33:77–82.
Wetmore, A. 1922a. Bird remains from the caves of Porto Rico. Bulletin of the American Museum of Natural History 46:297–333.
Wetmore, A. 1922b. REmains of birds from caves in the Republic of Haiti. Smithsonian Miscellaneous Collections 74(4):1–4.
White, J. L. 1993. Indicators of locomotor habits in xenarthrans: evidence for locomotor heterogeneity among fossil sloths. Journal of Vertebrate Paleontology 13(2):230–242.
White, J. L., and R. D. E. MacPhee. 2001. The sloths of the West Indies: a systematic and phylogenetic review; pp. 201–235 in C. A. Woods, and F. E. Sergile (eds.), Biogeography of the West Indies: Patterns and Perspectives. CRC Press, Boca Raton, Florida.
Wible, J. R. 2008. On the cranial osteology of the Hispaniolan solenodon, Solenodon paradoxus Brandt, 1833 (Mammalia, Lipotyphla, Solenodontidae). Annals of the Carnegie Museum 77(3):321–402.
Williams, E. 1950. Testudo cubensis and the evolution of Western Hemisphere tortoises. Bulletin of the American Museum of Natural History 95(1):1–36.
Williams, E. 1952. A new fossil tortoise from Mona Island, West Indies, and a tentative arrangement of the tortoises of the World. Bulletin of the American Museum of Natural History 99(9):541–560.
Woods, C. A. 1989. A new capromyid rodent from Haiti: the origin, evolution, and extinction of West Indian rodents, and their bearing on the origin of New World hystricognaths. Natural History Museum of Los Angeles County Science Series 33:59–90.
Yom-Tov, Y., and D. Wool. 1997. Do the contents of barn owl pellets accurately represent the proportion of prey species in the field? The Condor 99:972–976.
ANEXO 1.
LISTA DE OCURRENCIA POR SITIO
| Unidad | Taxón | NISP | % NISP | MNI | % MNI |
|---|---|---|---|---|---|
| UE-2 | Anolis sp. | 1 | – | 1 | – |
| UE-3 | Anolis sp. | 1 | 20% | 1 | 25% |
| Comptus cf. C. stenurus | 1 | 20% | 1 | 25% | |
| Capromyinae indet. | 2 | 40% | 1 | 25% | |
| Solenodon paradoxus | 1 | 20% | 1 | 25% | |
| Total | 5 | 4 |
| Unidad | Taxón | NISP | % NISP | MNI | % MNI |
|---|---|---|---|---|---|
| Superficie | Mammalia indet. | 157 | 65.15% | – | – |
| Acratocnus ye | 5 | 2.07% | 2 | 16.67% | |
| Neocnus toupiti | 2 | 0.83% | 1 | 8.33% | |
| Caviomorpha indet. | 48 | 19.92% | – | – | |
| Capromyinae indet. | 16 | 6.64% | – | – | |
| Plagiodontia sp. | 2 | 0.83% | 1 | 8.33% | |
| Hexolobodon phenax | 3 | 1.24% | 2 | 16.67% | |
| Isolobodon portoricensis | 5 | 2.07% | 4 | 33.33% | |
| Quemisia gravis | 1 | 0.41% | 1 | 8.33% | |
| Aves indet. | 1 | 0.41% | – | – | |
| Tyto sp. | 1 | 0.41% | 1 | 8.33% | |
| Total | 241 | 12 |
| Unidad | Taxón | NISP | % NISP | MNI | % MNI |
|---|---|---|---|---|---|
| UE-4 | Caviomorpha indet. | 83 | 86.46% | – | – |
| Capromyinae indet. | 3 | 3.12% | 2 | 22.22 | |
| Plagiodontia sp. | 1 | 1.04% | 1 | 11.11 | |
| Hexolobodon phenax | 4 | 4.17% | 3 | 33.33 | |
| Isolobodon sp. | 1 | 1.04% | – | – | |
| Isolobodon montanus | 1 | 1.04% | 1 | 11.11 | |
| Isolobodon portoricensis | 2 | 2.08% | 1 | 11.11 | |
| Antillothrix bernensis | 1 | 1.04% | 1 | 11.11 | |
| Total | 96 | 9 |
| Unidad | Taxón | NISP | % NISP | MNI | % MNI |
|---|---|---|---|---|---|
| UE-6 | Squamata indet. | 5 | 1.86% | – | – |
| Cyclura cornuta | 9 | 3.35% | 2 | 11.11% | |
| Anolis sp. | 1 | 0.37% | 1 | 5.56% | |
| Haitiophis anomalus | 1 | 0.37% | 1 | 5.56% | |
| Chelonoidis sp. | 14 | 5.20% | 1 | 5.56% | |
| Mammalia indet. | 122 | 45.35% | – | – | |
| Acratocnus ye | 8 | 2.97% | 1 | 5.56% | |
| Caviomorpha indet. | 78 | 29.00% | – | – | |
| Capromyinae indet. | 18 | 6.69% | 5 | 27.78% | |
| Plagiodontia cf. P. aedium | 1 | 0.37% | 1 | 5.56% | |
| Hexolobodon phenax | 5 | 1.86% | 2 | 11.11% | |
| Isolobodon sp. | 2 | 0.74% | 1 | 5.56% | |
| Quemisia gravis | 3 | 1.11% | 1 | 5.56% | |
| Nesophontes sp. | 1 | 0.37% | 1 | 5.56% | |
| Solenodon paradoxus | 1 | 0.37% | 1 | 5.56% | |
| Total | 269 | 18 |
CONTINUACIÓN DEL DOCUMENTO: TABLAS Y TEXTO RESTANTE
| Unidad | Taxón | NISP | % NISP | MNI | % MNI |
|---|---|---|---|---|---|
| UE-7 | Mammalia/Reptilia indet. |
175 | 35.86% | – | – |
| Anolis sp. | 1 | 0.20% | 1 | 20% | |
| Serpentes | 2 | 0.41% | – | – | |
| Megalocnidae indet. | 1 | 0.20% | 1 | 20% | |
| Acratocnus ye | 1 | 0.20% | 1 | 20% | |
| Caviomorpha indet. | 232 | 47.54% | – | – | |
| Capromyinae indet. | 72 | 14.75% | – | – | |
| Quemisia gravis | 2 | 0.41% | 1 | 20% | |
| Antillothrix bernensis | 1 | 0.20% | 1 | 20% | |
| Passeriformes | 1 | 0.20% | – | – | |
| Total | 488 | 5 |
| Unidad | Taxón | NISP | % NISP | MNI | % MNI |
|---|---|---|---|---|---|
| UE-8 | Mammalia/Reptilia indet. |
13 | 3.82% | – | – |
| Cyclura cornuta | 8 | 2.35% | 1 | 4.35% | |
| Anolis sp. | 5 | 1.47% | 3 | 13.04% | |
| Chelonoidis sp. | 41 | 12.06% | – | – | |
| Chelonoidis marcanoi | 1 | 0.29% | 1 | 4.35% | |
| Mammalia indet. | 139 | 40.88% | – | – | |
| Acratocnus ye | 11 | 3.24% | 2 | 8.70% | |
| Neocnus sp. | 1 | 0.29% | 1 | 4.35% | |
| Caviomorpha indet. | 78 | 22.94% | – | – | |
| Capromyinae indet. | 31 | 9.12% | 8 | 34.78% | |
| Plagiodontia sp. | 1 | 0.29% | 1 | 4.35% | |
| Hexolobodon phenax | 7 | 2.06% | 2 | 8.70% | |
| Isolobodon portoricensis | 1 | 0.29% | 1 | 4.35% | |
| Brotomys sp. | 1 | 0.29% | 1 | 4.35% | |
| Nesophontes sp. | 1 | 0.29% | 1 | 4.35% | |
| Solenodon paradoxus | 1 | 0.29% | 1 | 4.35% | |
| Total | 340 | 23 |
| Unidad | Taxón | NISP | % NISP | MNI | % MNI |
|---|---|---|---|---|---|
| UE-9 | Cyclura cornuta | 4 | 0.46% | 1 | 3.03% |
| Anolis spp. | 6 | 0.69% | 4 | 12.12% | |
| Chilabothrus striatus | 3 | 0.35% | 2 | 6.06% | |
| Chelonia indet. | 15 | 1.73% | – | – | |
| Chelonoidis marcanoi | 2 | 0.23% | 1 | 3.03% | |
| Mammalia indet. | 322 | 37.10% | – | – | |
| Megalocnidae indet. | 4 | 0.46% | – | – | |
| Acratocnus sp. | 1 | 0.12% | – | – | |
| Acratocnus ye | 15 | 1.73% | 2 | 6.06% | |
| Neocnus sp. | 1 | 0.12% | 1 | 3.03% | |
| Caviomorpha indet. | 250 | 28.80% | – | – | |
| Capromyinae indet. | 201 | 23.16% | – | – | |
| Plagiodontia sp. | 1 | 0.12% | 1 | 3.03% | |
| Plagiodontia cf. P. aedium | 3 | 0.35% | 2 | 6.06% | |
| Plagiodontia araeum | 1 | 0.12% | 1 | 3.03% | |
| Hexolobodon phenax | 26 | 2.00% | 11 | 33.33% | |
| Isolobodon sp. | 1 | 0.12% | 1 | 3.03% | |
| Isolobodon montanus | 3 | 0.35% | 2 | 6.06% | |
| Isolobodon portoricensis | 1 | 0.12% | 1 | 3.03% | |
| Quemisia gravis | 4 | 0.46% | 2 | 6.06% | |
| Antillothrix bernensis | 3 | 0.35% | 1 | 3.03% | |
| Aves indet. | 1 | 0.12% | – | – | |
| Total | 868 | 33 |
| Unidad | Taxón | NISP | % NISP | MNI | % MNI |
|---|---|---|---|---|---|
| UE-10 | Anolis sp. | 1 | 0.60% | 1 | 16.67% |
| Mammalia indet. | 113 | 67.66% | – | – | |
| Parocnus serus | 1 | 0.60% | 1 | 16.67% | |
| Acratocnus ye | 1 | 0.60% | 1 | 16.67% | |
| Neocnus sp. | 1 | 0.60% | 1 | 16.67% | |
| Caviomorpha indet. | 26 | 15.57% | – | – | |
| Capromyinae indet. | 22 | 13.17% | – | – | |
| Hexolobodon phenax | 1 | 0.60% | 1 | 16.67% | |
| Plagiodontia sp. | 1 | 0.60% | 1 | 16.67% | |
| Total | 167 | 6 |
| Unidad | Taxón | NISP | % NISP | MNI | % MNI |
|---|---|---|---|---|---|
| UE-17 | Cyclura cornuta | 3 | 0.80% | 1 | 5.88% |
| Chilabothrus striatus | 2 | 0.53% | 1 | 5.88% | |
| Chelonoidis sp. | 2 | 0.53% | 1 | 5.88% | |
| Mammalia indet. | 167 | 44.65% | – | – | |
| Acratocnus ye | 5 | 1.34% | 1 | 5.88% | |
| Parocnus serus | 11 | 2.94% | 1 | 5.88% | |
| Neocnus sp. | 3 | 0.80% | 1 | 5.88% | |
| Caviomorpha indet. | 76 | 20.32% | – | – | |
| Capromyinae indet. | 85 | 22.73% | – | – | |
| Plagiodontia sp. | 1 | 0.27% | 1 | 5.88% | |
| Hexolobodon phenax | 10 | 2.67% | 6 | 35.29% | |
| Isolobodon montanus | 1 | 0.27% | 1 | 5.88% | |
| Quemisia gravis | 6 | 1.60% | 2 | 11.76% | |
| Solenodon paradoxus | 1 | 0.27% | 1 | 5.88% | |
| Aves indet. | 1 | 0.27% | – | – | |
| Total | 374 | 17 |
| Unidad | Taxón | NISP | % NISP | MNI | % MNI |
|---|---|---|---|---|---|
| UE-18 | Vertebrata indet. | 254 | 43.05% | – | – |
| Lacertilia indet. | 18 | 3.05% | – | – | |
| Anolis sp. | 9 | 1.53% | 2 | 11.11% | |
| Cyclura cornuta | 7 | 1.19% | 1 | 5.56% | |
| Serpentes indet. | 1 | 0.17% | – | – | |
| Colubridae indet. | 1 | 0.17% | 1 | 5.56% | |
| Haitiophis anomalus | 1 | 0.17% | 1 | 5.56% | |
| Chilabothrus striatus | 3 | 0.51% | 1 | 5.56% | |
| Chelonoidis marcanoi | 5 | 0.85% | 1 | 5.56% | |
| Mammalia indet. | 63 | 10.68% | – | – | |
| Acratocnus sp. | 2 | 0.34% | – | – | |
| Acratocnus ye | 9 | 1.53% | 1 | 5.56% | |
| Neocnus sp. | 1 | 0.17% | 1 | 5.56% | |
| Caviomorpha indet. | 130 | 22.03% | – | – | |
| Capromyinae indet. | 71 | 12.03% | – | – | |
| Plagiodontia sp. | 3 | 0.51% | 2 | 11.11% | |
| Hexolobodon phenax | 5 | 0.85% | 3 | 16.67% | |
| Isolobodon sp. | 1 | 0.17% | 1 | 5.56% | |
| Isolobodon portoricensis | 2 | 0.34% | 2 | 11.11% | |
| Quemisia gravis | 1 | 0.17% | 1 | 5.56% | |
| Aves indet. | 1 | 0.17% | – | – | |
| Passeriformes indet. | 2 | 0.34% | – | – | |
| Total | 590 | 18 |
ANEXO 2. MEDIDAS DE ESPECÍMENES SELECCIONADOS
| Taxón | No. | Unidad | Largo Total |
Largo de Hilera Dental |
Longitud Hocico- Cloaca |
|---|---|---|---|---|---|
| Anolis sp. | S-AD-001 | UE-2 | – | 21.8 | 133 |
| Anolis sp. | S-AD-002 | UE-3 | 25.7 | 22.5 | 137 |
| Anolis sp. | S-CFD-016 | UE-6 | 29.8 | 27.1 | 165 |
| Anolis sp. | S-CFD-105 | UE-7 | – | 17.6 | 107 |
| Anolis sp. | S-CFD-038 | UE-9 | 20.1 | 122 | |
| Anolis sp. | S-CFD-038 | UE-9 | 15.9 | 97 | |
| Anolis sp. | S-CFD-112 | UE-9 | 20.3 | 124 | |
| Anolis sp. | S-CFD-140 | UE-18 | – | 19.8 | 120 |
| Anolis sp. | S-CFD-145 | UE-18 | – | 10 | 61.1 |
| Comptus cf. C. stenurus |
S-AD-003 | UE-3 | 29.7 | 22.8 | 168 |
| S-CFD-057 | ||||||||||
|---|---|---|---|---|---|---|---|---|---|---|
| LC | LPP | HC | WC | HCo | WCo | WPr | WPo | WNC | HNC | |
| T-A | 20.8+ | 20.8 | – | – | 6.2 | 7.6 | 19.9 | 18.7 | 5.2 | 4.1 |
| T-B | – | 21.2 | 7.6 | 10.2 | – | – | 20.2e | 20.6e | 5.7 | 3.4 |
| T-C | – | 17 | 7.4 | – | – | – | 17e | 16 | 5.8 | 5.7 |
| T-D | 18.5 | 17.2 | 5.9 | 7.6 | 4.8 | 5.8 | 14.8 | 12.8e | 4.5 | 3.6 |
| T-E | 18.8 | – | 5.6 | 8.5 | 4.5 | 6.4 | 14.6e | – | 4.1 | 3.5 |
| T-F | 16.2 | – | 6.5 | 10.3 | 6.8 | 7.8 | – | – | – | – |
| Ca-A | 16.1 | – | 7.4 | 7 | 5.1 | 5.3 | 11e | – | 2.5 | 2 |
| S-CFD-073 | ||||||||||
| AT-A | 18.8 | 18.3 | 7.2 | 9.9 | 5.9 | 7.7 | 16.6e | 16e | 4.9 | 3.5 |
| AT-B | 14.7 | 13.9 | 5.4 | 6.6 | 4.6 | 6 | 13.7 | 12.2e | 4.9 | 4.2 |
| PT-A | 17 | 16.6 | 6.4 | 7.2 | 4.9+ | 5.6+ | 15 | 14 | 5.4 | 3 |
| PT-B | 15.8 | 15.3 | 5.7 | 7.8 | 4.8 | 6 | 15.4 | 15 | 5.6 | 3.3 |
| PT-C | 12.3 | 13.5 | 5.6 | 7.2 | 4.6 | 6 | 16.1 | 15.9 | 6.3 | 3.5 |
| AC | 14.8 | 14.7 | 7.5 | 8.6 | 6.3 | 6.8 | 14.2e | 10.7 | 4.1 | 3.2 |
| PC | 19.5 | 19.6 | 6.5 | 7 | 4.7 | 5.4 | 8.2e | 6.8 | 4.2 | 2.3 |
| S-CFD-113 | ||||||||||
| PT-A | 19.6 | 18.9 | 7.6 | 8.8 | 6.4 | 7.4 | 21.1 | 20.6e | – | – |
| PT-B | 13.5 | 13.4 | 4.1 | 6 | 2.8 | 4.7 | 10.8 | 9.7 | 2.8 | 2 |
| Ca | 12.4+ | 14 | 5 | 5.3 | – | – | 7.6 | 7.2e | – | – |
| S-CFD-126 | ||||||||||
| PT | 21.5 | 20.7 | 8.3 | 9.4 | – | – | 19.9 | 19.3 | 5.3 | 4 |
| AC | 18 | 17.9 | 7 | 8.6 | 7.1 | 7.4 | 15.6 | 13.2e | 4.9 | 3.6 |
| PC | 14.2 | 13.6 | 4.8 | 5.3 | 3.7 | 4.3 | 6.8e | 6.2e | 3.3 | 2 |
| Abbreviations: AC, anterior caudal vertebra; AT, anterior thoracic vertebra; Ca, caudal; e, estimated measurement; vertebra HC, height of cotyle; HCo, height of condyle; HNC, height of neural canal; LC, length of centrum; LPP, length pre- to postzygapophyses; PC, posterior caudal vertebra; PT, posterior thoracic vertebra; T, thoracic vertebra; WC, width of cotyle; WCo, width of condyle; WNC, width of neural canal; WPo, width across postzygapophyses; WPr, width across prezygapophyses; +, approximate measurements. |
||||||||||
| Ilión (S-CFD-014) |
Innominado (S-CFD-073) |
Innominado (S-CFD-050) |
|
|---|---|---|---|
| Altura del ilión | 19.3 | 17.1 | 13.5 |
| Altura del acetábulo | – | 14.4 | 10 |
| Longitud del acetábulo | – | 16.3 | 11 |
| Longitud hocico-cloaca | 429 | 380 | 300 |
| Chilabothrus striatus (S-CFD-114) | ||||||||||||
|---|---|---|---|---|---|---|---|---|---|---|---|---|
| LC | TH | HC | WC | HCo | WCo | WPr | WPo | WZ | LPP | WN | HN | |
| V1 | 10.2 | – | 5.3 | 5.3 | 4.7 | 5.1 | 18e | 17.2 | 10.8 | 6.6e | 3.7 | 2.5 |
| V2 | – | 13.2 | 3.5 | 3.5 | – | – | 10.7 | 10.2e | 7.8 | 5.9 | 3.1 | 2 |
| Chilabothrus striatus (S-CFD-127) | ||||||||||||
| V1 | 8.1+ | 14.4 | 4.8 | 5.5 | – | – | 16e | 15.8e | 10.4 | 6.8 | 3.8 | 2.3 |
| V2 | 6.1 | 7.3 | 2.8 | 2.8 | 2.6 | 2.7 | 8.8e | 8.9 | 6 | 3.8 | 2.6 | 1.5 |
| Haitiophis anomalus (S-CFD-058) | ||||||||||||
| V1 | 13.2 | 13.5 | 5 | 5.7 | 4.4 | 4.8 | 17.3 | 14.4 | 7.7 | – | 3.7 | 3.3 |
| Abbreviations: e, estimated measurement; HC, height of cotyle; HCo, height of condyle; HN, height of neural canal; LC, length of centrum; LPP, length pre- to postzygapophyses; TH, total height; WC, width of cotyle; WCo, width of condyle; WN, width of neural canal; WPo, width across postzygapophyses; WPr, width across prezygapophyses; WZ, width across zygosphene; +, approximate measurements. |
||||||||||||
| Chelonoidis sp. | Chelonoidis marcanoi | ||||
|---|---|---|---|---|---|
| Húmeros | S-CFD-128 | S-CFD-139 | NHMUK PV R 36954* |
MNHNSD FOS 23.1054* |
MNHNSD FOS 23.1057* |
| Longitud total | – | 94.9+ | 127.6 | 125.7 | 86.9 |
| Longitud de la cabeza | – | 20.3 | 24.9 | 22.0 | 16.3 |
| Anchura de la cabeza | – | 19 | 22.4 | – | 15.2 |
| Ancho entre los trocánteres |
– | 27.1+ | 38.1 | 40.4 | 28.2 |
| Longitud del trocánter menor |
– | – | – | 29.3 | 22.1 |
| Longitud del trocánter mayor |
– | – | 51.8 | 52.3 | 34 |
| Longitud de la cicatriz del M. latissimus dorsi |
13.4 | 14.7 | 14.5 | 16.5 | 10 |
| Ancho de la cicatriz del M. latissimus dorsi |
7.7 | 8.6 | 6.5 | 6 | 6.7 |
| Altura de la diáfisis en la mitad |
13.5 | 11.5 | 16.4 | 12.9 | 9.8 |
| Ancho de la diáfisis en la mitad |
11.8 | 13.7 | 14.8 | 14.8 | 10.5 |
| Ancho de la superficie articular distal |
– | 27.7+ | – | 38.6 | 30.9 |
| Chelonoidis sp. – 1er falange distal del pie (S-CFD-128) | |||||
| Longitud total | 28.9 | ||||
| Anchura proximal | 15 | ||||
| Altura a la mitad | 7.8 | ||||
| Anchura a la mitad | 12 | ||||
| *medidas tomadas de Turvey et al. (2017:tabla 1). +, medidas tomadas en elementos incompletos. | |||||
| C. marcanoi | C. gersoni | C. alburyorum | ||
|---|---|---|---|---|
| S-CFD-026 | MHD 1000* |
MHNNSD FOS 23.001* |
UF 225400* | |
| Longitud máxima | 60.6 | – | – | – |
| Longitud en el centro | 50.8 | 44 | 41.53 | 34.6 |
| Anchura máxima | 48.3 | – | – | – |
| Grosor máximo | 12.4 | – | – | – |
| Longitud de la proyección gular | 15 | – | – | – |
| Ancho de la proyección gular | 17.9 | – | – | – |
| *Medidas adoptadas de Viñola-López y Almonte, 2022:tabla 1). | ||||
| Acratocnus ye | MD | BL | TL/H | EA | IA |
|---|---|---|---|---|---|
| Caniniforme superior derecho (S-CFD-040) | 7.4 | 9.4 | 24.4 | 47 | 38 |
| Caniniforme superior derecho (S-CFD-052) | 8.1 | 9.8 | 43 | 48 | 38 |
| Molariforme superior izquierdo (S-CFD-115) | 8.1 | 11 | 27.3 | – | – |
| Caniniforme inferior derecho (S-CFD-106) | 8.6 | 5.2 | 32.6 | – | – |
| Caniniforme inferior izquierdo (S-CFD-032) | 8.9 | 5.1 | 21.1+ | – | – |
| Caniniforme inferior izquierdo (S-CFD-052) | 9.2 | 5.6 | 35.2 | – | – |
| Molariforme inferior izquierdo (S-CFD-075) | 8.6 | 11.1 | 28.9 | – | – |
| Neocnus sp. | |||||
| Caniniforme inferior derecho (S-CFD-130) | 8.9 | 4.9 | 16.9 | – | – |
| 1er molariforme inferior izquierdo (S-CFD-130) | 6.7 | 6.3 | 21.9 | – | – |
| Neocnus toupiti | |||||
| Tercer molariforme superior derecho (S-CFD-116) | 4.3 | 7 | 18.4 | – | – |
| Parocnus serus | |||||
| Caniniforme superior derecho (S-CFD-046) | 11.6 | 11.2 | 73.2 | 90 | 68 |
| Abbreviations: MD, mesiodistal length; BL, buccolingual width; TL/H, total (linear) length/height; EA, external arc length; IA, internal arc length. |
|||||
| S-CFD- 015 |
S-CFD- 027 |
S-CFD- 076 (A) |
S-CFD- 076 (b) |
S-CFD- 088 (A) |
S-CFD- 088 (B) |
S-CFD- 129 |
|
|---|---|---|---|---|---|---|---|
| LC | 16.8 | 16.1 | 17.9 | 19.1 | 16.5 | 16.6 | 16 |
| WC | 19.1 | 18.3 | 24.7 | 21.7 | 20.9 | 20.6 | 18.4e |
| HC | 15.3 | 12.8 | 18.8 | 16.9 | 17.3 | 16.4 | 13.3 |
| MWTP | 50.9 | 58.4 e | 55.4e | – | – | – | – |
| HNC | – | 6.2 | – | – | – | – | – |
| WNC | – | 11.4 | 13.8 | 14 | – | – | – |
| MH | – | 20.4 | – | – | – | – | – |
| WPRZ | – | 21.8 | 27.2e | – | – | – | – |
| Abbreviations: e, estimated measurement; HC, height of centrum; HNC, height of neural canal; LC, length of centrum; MH, maximum height; MWTP, maximum width across transverse processes; WC, width of centrum; WNC, width of neural canal; WPRZ, width across prezygapophyses. |
|||||||
| S-CFD- 001 (MCIII) |
S-CFD- 004 (MCIII) |
S-CFD- 004 (MCII) |
S-CFD- 015 (MCIII) |
S-CFD- 032 (MCIII) |
S-CFD- 027 (MCII) |
S-CFD- 027 (MCII) |
|
|---|---|---|---|---|---|---|---|
| Largo total | 29.9 | 28.2 | 21.6 | 23.3 | 28.7 | 24.8 | 23.6 |
| Ancho prox. | 11.2 | 11.3 | 10.9 | 10.1 | 10 | 10 | 9 |
| Altura proximal |
14.1 | 12 | 13.6 | 10.6 | 12.4 | 12.9 | 11.3 |
| Ancho en la mitad |
8.9 | 7.6 | 7.1 | 9.7 | 7.7 | 10.2 | 9.4 |
| Altura en la mitad |
7.6 | 6.9 | 7.4 | 6.5 | 6.8 | 8.3 | 6.2 |
| Ancho distal | 10.4 | 10.9 | 9.2 | 10.1 | 10.2 | 11 | 8.8 |
| Altura distal | 17.2 | 14.6 | 14.8 | 13.4 | 14.7 | 15.6 | 13 |
| Abreviaciones: MC, metacarpal; prox., proximal. | |||||||
| TL | PW | PH | MW | MH | DW | DH | |
|---|---|---|---|---|---|---|---|
| S-CFD-015 (l) | 28.8 | 9 | 13.1 | 8.5 | 9 | 8.9 | 13.4 |
| S-CFD-015 (r) | 26 | 8.5 | 14.3 | 9 | 7.6 | 8.4 | 10.4 |
| S-CFD-015 (r) | 25.9 | 10.4 | 13.2 | 10.2 | 7.5 | 9.3 | 11.1 |
| S-CFD-015 (r) | 26.9 | 8.8 | 11.5 | 8.1 | 7 | 7 | 10.8 |
| S-CFD-027 | 26.9 | 10.5 | 12.6 | – | – | 7.3 | 10.8 |
| Abbreviations: DH, distal height; DW, distal width; l, left; MH, mid height; MW, mid width; PH, proximal height; PW, proximal width; r, right; TL, total length. |
|||||||
| Acratocnus ye | ML | WCC | HCC | PH | PW |
|---|---|---|---|---|---|
| S-CFD-015 (l) | 39.7 | 4.3 | 9.2 | 13.5 | 9.7 |
| S-CFD-015 (r) | 45.7+ | 4.7 | 10.3 | 14.6 | 9.6 |
| S-CFD-027 (r) | 58 | 6.2 | 12.7 | 17.1 | 11.3 |
| S-CFD-129 | – | – | – | 10.4 | 7.8 |
| Neocnus sp. | ML | WCC | HCC | PH | PW |
| S-CFD-130 (l) | 31.8+ | 5.9 | 6.8 | 10.7 | 10.5 |
| Parocnus serus | ML | WCC | HCC | PH | PW |
| S-CFD-046 (l) | 50.6 | 5.8 | 10.1 | 15.3 | 12 |
| S-CFD-046 (r) | 54.8 | 6.4 | 10 | 16.3 | 11.8 |
| Abbreviations: HCC, height of claw core; l, left; ML, maximum length; PH, proximal height; PW, proximal width; r, right; WCC, Width of claw core. |
|||||
| Fíbula distal (S-CFD-129) | |
|---|---|
| Ancho mediolateral de la diáfisis | 6.6 |
| Grosor anteroposterior de la diáfisis | 8.3 |
| Ancho máximo del extremo distal | 12.6 |
| Grosor máximo del extremo distal | 14.5 |
| Astrágalo (S-CFD-129) | |
| Longitud total | 21.2 |
| Longitud de la superficie tibial | 14.1 |
| Ancho de la superficie tibial | 11.2 |
| Altura de la superficie articular fibular | 9.3 |
| Grosor de la superficie articular fibular | 14.2 |
| Anchura del cuello | 9.4 |
| Altura de la articulación del proceso navicular | 10.1 |
| Ancho de la articulación del proceso navicular | 10.3 |
| Ancho de la superficie ectal | 11.8 |
| Longitud de la superficie ectal | 6 |
| Neocnus sp. (S-CFD-051) | |
|---|---|
| Cabeza, profundidad anteroposterior | 17.1 |
| Cabeza, ancho mediolateral | 12.7 |
| Tuberosidades proximales, ancho máximo mediolateral | 19.1 |
| Diáfisis, grosor mediolateral | 13.6 |
| Diáfisis, profundidad anteroposterior | 11.3 |
| Neocnus toupiti (S-CFD-002) | |
| Ancho máximo distal | 33.8 |
| Ancho al nivel de los cóndilos | 17.5 |
| Longitud (proximodistal) del foramen epicondilar | 8.8 |
| Ancho anteroposterior del foramen epicondilar | 4.6 |
| Neocnus sp. | Parocnus serus | |
|---|---|---|
| Longitud total | 107.8* | – |
| Circunferencia de la cabeza femoral | – | 122 |
| Diámetro de la cabeza femoral | – | 37.5 |
| Anchura máxima del extremo proximal (cabeza del fémur al trocánter mayor) |
36.8* | 83.9 |
| Máximo grosor anteroposterior en el extremo proximal |
17.7* | – |
| Altura del trocánter mayor | – | 63.3 |
| Grosor del trocánter mayor | – | 29.3 |
| Grosor del tercer trocánter | – | 12.6 |
| Profundidad de la fosa trocantérica | – | 4.8 |
| Ancho entre el trocánter mayor y menor | – | 69 |
| Longitud anteroposterior de la diáfisis a la altura del trocánter menor |
– | 21.3 |
| Anchura mediolateral al nivel del 3er trocánter | – | 50.7 |
| Grosor de la diáfisis distal al 3er trocánter | – | 38.1 |
| Longitud anteroposterior de la diáfisis distal al 3er trocánter |
– | 21.1 |
| Ancho máximo en el extremo distal | 38.4* | – |
| Grosor máximo anteroposterior en el extremo distal |
19* | – |
| *tal como preservado, sin las epífises. | ||
| dP4 | M1 | M2 | M3 | ||||||
|---|---|---|---|---|---|---|---|---|---|
| Plagiodontia sp. | TL | MD | BL | MD | BL | MD | BL | MD | BL |
| S-CFD-005 (r) | – | – | – | – | – | 5.6 | 6 | – | – |
| S-CFD-053 (r) | – | – | – | 6.3 | 5.8 | – | – | – | – |
| S-CFD-117 (l) | – | – | – | – | – | 5.3 | 5.3 | – | – |
| dP4 | M1 | M2 | M3 | ||||||
| Plagiodontia araeum | TL | MD | BL | MD | BL | MD | BL | MD | BL |
| S-CFD-118 (r) | – | 6.4 | 9.5 | – | – | – | – | – | – |
| dP4 | M1 | M2 | M3 | ||||||
| Hexolobodon phenax | TL | MD | BL | MD | BL | MD | BL | MD | BL |
| S-CFD-003 (r) | – | 6.3 | 5.2 | – | – | – | – | – | – |
| S-CFD-011 (l) | 20.9 | 6.1 | 5.2 | 5.1 | 5.6 | 5.3 | 5.9 | 4.3 | 5.4 |
| S-CFD-019 (r) | – | 6.5 | 5.6 | – | – | 5.6 | 6.5 | 5.1 | 5.5 |
| S-CFD-019 (r) | – | – | – | – | – | – | – | 5.7 | 5.6 |
| S-CFD-030 (l/r) | 5.7/5.7 | 5.0/4.7 | 4.9/4.9 | 4.9/4.6 | 5/5 | 4.9/4.7 | 4.4/5.1 | 4.5/4.7 | |
| S-CFD-034 (l/r) | 22.5/- | 6.9/- | 5.4/- | – | – | 5.3/5.4 | 5.5/5.7 | 5.4/5.4 | 5.7/5.6 |
| S-CFD-042 (l) | – | – | – | 6.2 | 5.4 | – | – | – | – |
| S-CFD-042 (l) | – | 6.6 | 5.4 | – | – | – | – | – | – |
| S-CFD-048 (r) | – | 7 | 5.5 | 5.5 | 5.2 | 5 | 5.6 | – | – |
| S-CFD-054 (l) | – | 6.5 | 5.5 | 5.8 | 6.5 | 5.1 | 6 | – | – |
| dP4 | M1 | M2 | M3 | ||||||
| Isolobodon portoricensis | TL | MD | BL | MD | BL | MD | BL | MD | BL |
| S-CFD-102 | – | 5.3 | 5.4 | – | – | – | – | – | – |
| dP4 | M1 | M2 | M3 | ||||||
| Quemisia gravis | TL | MD | BL | MD | BL | MD | BL | MD | BL |
| S-CFD-008 (r) | – | – | – | – | – | 9 | 6.6 | – | – |
| S-CFD-049 (r) | – | ||||||||
| S-CFD-120 (l) | – | – | – | – | – | 9 | 4.5 | – | – |
| S-CFD-134 (l) | – | 10.3 | 5.6 | – | – | – | – | – | – |
| Abbreviations: BL, buccolingual; l, left; MD, mesiodistal; r, right; TL, toothrow length. *Same specimen. |
|||||||||
| dp4 | m1 | m2 | m3 | ||||||
|---|---|---|---|---|---|---|---|---|---|
| Plagiodontia sp. | TL | MD | BL | MD | BL | MD | BL | MD | BL |
| S-CFD-010 (l) | – | 4.5 | 3.7 | 4.6 | 4.2 | – | – | – | – |
| S-CFD-098 (l) | 22 | – | – | – | – | – | – | – | – |
| dp4 | m1 | m2 | m3 | ||||||
| Plagiodontia cf. P. aedium | TL | MD | BL | MD | BL | MD | BL | MD | BL |
| S-CFD-020 (l) | – | – | – | – | – | – | – | ||
| dp4 | m1 | m2 | m3 | ||||||
| Hexolobodon phenax | TL | MD | BL | MD | BL | MD | BL | MD | BL |
| S-CFD-003 (r) | – | 7.2 | 5.2 | – | – | – | – | – | – |
| S-CFD-006 (l) | – | – | – | – | – | 5.6 | 6 | – | – |
| S-CFD-011 (l) | – | – | – | 6.3 | 6 | 6.1 | 6.3 | – | – |
| S-CFD-011 (l) | 23.8 | 5.8 | 4.9 | – | – | 5.5 | 5.8 | – | – |
| S-CFD-011 (l) | 24.3 | 6.1 | 5.1 | 6 | 5.8 | 5.4 | 5.8 | 5.8 | 5.7 |
| S-CFD-030 (l) | – | 6.2 | 4.7 | 4.9 | 5 | – | – | – | – |
| S-CFD-030 (l) | – | 5.5 | 4.5 | 5.5 | 5.3 | 5.1 | 5.6 | – | – |
| S-CFD-034 (r) | 23.1 | 5.7 | 4.7 | 5.6 | 5.5 | – | – | – | – |
| S-CFD-034 (r) | 22.6 | 6.2 | 4.7 | 6 | 5.4 | 5.4 | 5.8 | 4.8 | 5.7 |
| S-CFD-034 (l) | 22.2 | 5.9 | 4.5 | 5.3 | 5.2 | – | – | – | – |
| S-CFD-034 (l) | – | 6.6 | 5.4 | 5.4 | 5.7 | 5 | 5.9 | – | – |
| S-CFD-034 (l) | – | 6.8 | 5 | 5.3 | 5.7 | 5.4 | 5.8 | – | – |
| S-CFD-042 (l) | – | – | – | – | – | 5.4 | 6 | – | – |
| S-CFD-042 (l) | – | 6.4 | 4.6 | – | – | – | – | – | – |
| S-CFD-042 (l) | – | 6.3 | 5.1 | 5.6 | 5.8 | 5.7 | 6.1 | – | – |
| S-CFD-042 (r) | – | – | – | – | – | 5.5 | 6.5 | – | – |
| S-CFD-042 (r) | – | 5.1 | 4.3 | 5.3 | 4.7 | – | – | – | – |
| S-CFD-042 (r) | – | 5.8 | 4.8 | 5.8 | 5.3 | – | – | – | – |
| S-CFD-042 (r) | – | 5.8 | 5.3 | 5.3 | 5.9 | – | – | – | – |
| S-CFD-042 (r) | – | 5.7 | 4.7 | 4.9 | 4.9 | 4.7 | 4.4 | – | – |
| S-CFD-042 (r) | – | 4.6 | 4.3 | 5.4 | 4.6 | 4.6 | 4.4 | – | – |
| S-CFD-045 (l) | 23.5 | 5.7 | 4.8 | 5.4 | 5.6 | 5.7 | 5.7 | 5.9 | 5.4 |
| S-CFD-132 (mandible, l) | – | 6.7 | 5.5 | 5.7 | 5.5 | – | – | – | – |
| S-CFD-132 (dp4, l) | – | 5.9 | 4.9 | – | – | – | – | – | – |
| S-CFD-132 (dp4, r) | – | 8 | 5.1 | – | – | – | – | – | – |
| S-CFD-048 (l) | – | 5.6 | 4.7 | 5.2 | 5.2 | – | – | – | – |
| S-CFD-048 (l) | – | 6.9 | 4.9 | 5.6 | 5.6 | 5.6 | 5.9 | 5.4 | 5.5 |
| S-CFD-048 (l) | – | – | – | 5.2 | 5.8 | 5.2 | 5.9 | – | – |
| S-CFD-048 (r) | – | 7.9 | 4.4 | 5.1 | 4.8 | 4.9 | 5.1 | – | – |
| S-CFD-048 (r) | – | – | – | 5.9 | 6.1 | 5.9 | 6.2 | – | – |
| S-CFD-048 (r) | – | 5.1 | 3.9 | 5.2 | 4.5 | – | – | – | – |
| S-CFD-054 (l) | – | 5.4 | 5.1 | 5.1 | 5.4 | – | – | – | – |
| S-CFD-054 (l) | – | 5.6 | 5.3 | – | – | – | – | – | – |
| S-CFD-054 (r) | 21.4 | 5.4 | 4.9 | 5.2 | 5.2 | 5.5 | 5.6 | 4.9 | 4.8 |
| dp4 | m1 | m2 | m3 | ||||||
| Isolobodon sp. | TL | MD | BL | MD | BL | MD | BL | MD | BL |
| S-CFD-043 (l) | 15 | – | – | – | – | ||||
| dp4 | m1 | m2 | m3 | ||||||
| Isolobodon montanus | TL | MD | BL | MD | BL | MD | BL | MD | BL |
| S-CFD-012 (l) | 19.6 | 5.9 | 4.6 | – | – | 5.5 | 4.6 | 5.3 | 5.2 |
| S-CFD-035 (r) | 14.8 | 4 | 3.5 | 3.8 | 4.1 | 3.9 | 4.1 | 4.2 | 3.6 |
| S-CFD-092 | 18.1 | 6.4 | 5 | 4.3 | 6.2 | 3.9 | 6.5 | 3.4 | 5.7 |
| S-CFD-133 (r) | 15.1 | 5 | 3.2 | 3.3 | 4.1 | 2.8 | 3.7 | 3.2 | 3.6 |
| dp4 | m1 | m2 | m3 | ||||||
| Isolobodon portoricensis | TL | MD | BL | MD | BL | MD | BL | MD | BL |
| S-CFD-036 (l) | – | 4.8 | 5.1 | – | – | – | – | – | – |
| S-CFD-055 (l) | 20.9 | 5.6 | 4.8 | 5.3 | 5.1 | 4.9 | 5.4 | 5 | 5.2 |
| S-CFD-099 (l) | 19.3 | – | – | – | – | – | – | – | – |
| S-CFD-099 (l) | 18.6 | – | – | – | – | – | – | – | – |
| S-CFD-099 (l) | 19.5 | – | – | – | – | – | – | – | – |
| S-CFD-099 (r) | 17.7 | – | – | – | – | – | – | – | – |
| S-CFD-103 (r) | 20.9 | – | – | – | – | 5.1 | 4.1 | – | – |
| (S-CFD-079 (l) | 16.9 | 4.7 | 3.4 | 3.6 | 3.7 | 3.5 | 3.7 | 3.5 | 3.7 |
| dp4 | m1 | m2 | m3 | ||||||
| Quemisia gravis | TL | MD | BL | MD | BL | MD | BL | MD | BL |
| S-CFD-037 (l) | 24.6 | 8.5 | 5.4 | 8.7 | 5.4 | 7.2 | 4.2 | – | – |
| S-CFD-056 (l) | – | 8.9 | 5 | 8.9 | 5.2 | – | – | – | – |
| Abbreviations: BL, buccolingual; l, left; MD, mesiodistal; r, right; TL, toothrow length. | |||||||||
|---|---|---|---|---|---|---|---|---|---|
| Hexolobodon phenax (S-CFD-100) |
Isolobodon sp. (S-CFD-065) |
Isolobodon sp. (S-CFD-101) |
||
|---|---|---|---|---|
| Left | Left | Right | Left | |
| Longitud total | 57 | 44.1 | 46.4 | 44 |
| Longitud al tubérculo menor | 54 | 42.2 | 45.2 | 42 |
| Ancho máximo proximal | 12 | 10 | 11 | 10 |
| Diámetro de la cabeza | 8 | 8.5 | 9.6 | 9 |
| Anchura de la diáfisis | 5 | 4.6 | 4.2 | 4 |
| Grosor de la diáfisis | 5 | 4.6 | 4.9 | 5 |
| Anchura distal | 15 | 12.5 | 12.6 | 12 |
| Diámetro de la cabeza troclear | 5 | 5.1 | 4.7 | 5 |
| Diámetro del labio medial de la tróclea |
6 | – | 5.7 | 5 |
| Anchura máxima de la tróclea | 10 | 8.8 | 9.1 | 7 |
| S-CFD-093 | S-CFD-120 | |||
| Anchura transversal en la mitad de la diáfisis | 9.8 | 8.1 | ||
| Grosor anteroposterior en la mitad de la diáfisis | 9.4 | 7.7 | ||
| Ancho máximo del extremo distal (como preservado) |
23.4 | – | ||
| Ancho/profundidad de la fosa del coronoide | 8/2.4 | – | ||
| Longitud y anchura anterior del foramen epicondilar |
4.7/2.3 | 3.8/2.1 | ||
| Longitud y anchura posterior del foramen epicondilar |
4.5/2.3 | 3.8/1.9 | ||
| Grosor anteroposterior del epicóndilo medial | 5.8 | – | ||
| Longitud del epicóndilo medial | 8.9 | – | ||
| Anchura transversal distal de la diáfisis (tomada al nivel de extremo proximal del foramen epicondilar) |
12.7 | 11.9 | ||
| Grosor distal de la diáfisis (tomada al nivel de extremo proximal del foramen epicondilar) |
6.5 | 6 |
| Capromyinae indet. | ||||||||||||
|---|---|---|---|---|---|---|---|---|---|---|---|---|
| TWS | ALS | MPW | MWD | MWP | WBC | LMH | WMH | HMH | LLH | WLH | HLH | |
| S-CFD- 018 (r) |
9.3 | 6.8 | – | 16.4 | 6.9 | 3.2 | 14.8 | 6.1 | 10.3 | 12.9 | 6.9 | 9.3 |
| S-CFD- 018 (r) |
– | 7 | – | 16.2 | 6.4 | 3.2 | 14.1 | 5.2 | 9.5 | 13.5 | 6.1 | 8.4 |
| S-CFD- 023 (r) |
11 | 8.6 | 24.2 | – | – | – | – | – | – | – | – | – |
| Quemisia gravis | ||||||||||||
| S-CFD- 024 (r) |
13.4 | 8.8 | 24.4 | – | – | – | – | – | – | – | – | – |
| Abbreviations: ALS, anteroposterior length of shaft; HLH, height of lateral hemicondyle; HMH, height of medial hemicondyle; l, left; LLH, length of lateral hemicondyle; LMH, length (anteroposterior) of medial hemicondyle; MWD, maximum width distally; MWP, maximum width of patellar articulation; r, right; TWS, transverse width of shaft; WBC, width between condyles; WLH, width of lateral hemicondyle; WMH, width of medial hemicondyle. |
||||||||||||
| S-CFD-135 | |
|---|---|
| Altura total, del extremo distal a la cabeza | 85.4 |
| Diámetro de la cabeza femoral | 12 |
| Grosor proximal, del trocánter mayor a la cabeza femoral | 23.8 |
| Anchura a través de los trocánteres | 17 |
| Anchura de la diáfisis a mitad de longitud | 11.7 |
| Profundidad de la diáfisis a mitad de longitud | 6.9 |
| Anchura distal de la diáfisis | 17.4 |
| Profundidad distal de la diáfisis | 7.6 |
| Ancho máximo de la tróclea patelar | 10.5 |
| Ancho máximo del extremo distal | 22.9 |
| Altura del cóndilo lateral | 9.7 |
| Ancho del cóndilo lateral | 7.7 |
| Altura del cóndilo medial | 13.3 |
| Ancho del cóndilo medial | 8 |
| Distancia entre los cóndilos | 5.7 |
| Profundidad máxima distal | 22.7 |
| No. de Especimen |
Taxón | Localidad/Unidad | Masa Corporal (kg) |
|---|---|---|---|
| S-CFD-053 | Plagiodontia sp. | CFD/UE-18 | 2.92 |
| S-CFD-098 | Plagiodontia sp. | CFD/Superficie | 2.40 |
| S-CFD-033 | Plagiodontia cf. P. aedium | CFD/UE-9 | 3.92 |
| S-CFD-033 | Plagiodontia cf. P. aedium | CFD/UE-9 | 4.05 |
| S-CFD-011 | Hexolobodon phenax | CFD/UE-4 | 2.99 |
| S-CFD-011 | Hexolobodon phenax | CFD/UE-4 | 3.17 |
| S-CFD-034 | Hexolobodon phenax | CFD/UE-9 | 2.46 |
| S-CFD-034 | Hexolobodon phenax | CFD/UE-9 | 2.59 |
| S-CFD-034 | Hexolobodon phenax | CFD/UE-9 | 2.75 |
| S-CFD-042 | Hexolobodon phenax | CFD/UE-9 | 2.79 |
| S-CFD-042 | Hexolobodon phenax | CFD/UE-9 | 3.10 |
| S-CFD-045 | Hexolobodon phenax | CFD/UE-10 | 2.89 |
| S-CFD-048 | Hexolobodon phenax | CFD/UE-17 | 2.96 |
| S-CFD-048 | Hexolobodon phenax | CFD/UE-17 | 2.55 |
| S-CFD-048 | Hexolobodon phenax | CFD/UE-17 | 2.65 |
| S-CFD-054 | Hexolobodon phenax | CFD/UE-18 | 2.22 |
| S-CFD-043 | Isolobodon sp. | CFD/UE-9 | 0.817 |
| S-CFD-012 | Isolobodon montanus | CFD/UE-4 | 1.73 |
| S-CFD-035 | Isolobodon montanus | CFD/UE-9 | 0.78 |
| S-CFD-092 | Isolobodon montanus | CFD/UE-9 | 1.38 |
| S-CFD-055 | Isolobodon portoricensis | CFD/UE-18 | 2.07 |
| S-CFD-099 | Isolobodon portoricensis | CFD/UE- Superficie |
1.66 |
| S-CFD-099 | Isolobodon portoricensis | CFD/UE- Superficie |
1.49 |
| S-CFD-099 | Isolobodon portoricensis | CFD/UE- Superficie |
1.71 |
| S-CFD-099 | Isolobodon portoricensis | CFD/UE- Superficie |
1.30 |
| S-CFD-103 | Isolobodon portoricensis | CFD/UE-4 | 2.07 |
| S-CFD-079 | Isolobodon portoricensis | CFD/UE-8 | 1.14 |
| S-CFD-037 | Quemisia gravis | CFD/UE-9 | 3.29 |
| Abreviaciones: CFD, Cueva Funeraria de Daniel. | |||
| Longitud, trocánter mayor al extremo distal | 17.7 |
|---|---|
| Longitudi, cabeza femoral al extremo distal | 17.5 |
| Diámetro de la cabeza femoral | 2.3 |
| Amplitud, trocánter mayor al menor | 3.9 |
| Amplitud, trocánter menor al tercero | 4.3 |
| Diámetro anteroposterior de la diáfisis | 1.7 |
| Diámetro mediolateral de la diáfisis | 1.7 |
| Anchura máxima del extremo distal | 3.7 |
| Anchura anteroposterior del extremo distal | 3.4 |
| Longitud del rostro | 36 |
| Amplitud máxima del rostro en su extremo distal (al nivel de los incisivos) |
10.6 |
| Altura máxima del rostro en su extremo distal (al nivel de los invisivos) |
14.7 |
| Longitud del paladar | 38.7 |
| Longitud de la hilera molar superior | 10.8 |
| Longitud de la hilera dental maxilar (canino al M3) | 25.9 |
| Amplitud a través de la hilera maxilar (entre los extremos labiales de los M1M2-M1M2) |
24.1 |
| Constricción interorbital | 16.7 |
| Longitud máxima del canino | 4.7/4.7 |
| Amplitud máxima del canino | -/2.3 |
| Longitud máxima del P1 | 3.2/3.4 |
| Amplitud máxima del P1 | 2/1.9 |
| Longitud máxima del P2 (P4 sensu Wible, 2008) | 3.4/3.4 |
| Amplitud máxima del P2 (P4 sensu Wible, 2008) | 3/2.9 |
| Longitud máxima del (P5 sensu Wible, 2008) | 6.2/- |
| Amplitud máxima del P4 (P5 sensu Wible, 2008) | 6.9/- |
| Longitud máxima del M1 | 4.5/4.6 |
| Amplitud máxima del M1 | 7.2/7.4 |
| Longitud máxima del M2 | 4.8/4.3 |
| Amplitud máxima del M2 | 6.8/6.7 |
| Longitud máxima del M3 | 2.6/2.7 |
| Amplitud máxima del M3 | 6.3/6.1 |
| Húmero distal izquierdo (CF-UE17) | ||
|---|---|---|
| Amplitud anteroposterior a la mitad de la diáfisis | 6.7 | |
| Amplitud transversal a la mitad de la diáfisis | 4 | |
| Amplitud máxima distal | 15.4 | |
| Amplitud de la tróclea | 7.7 | |
| Amplitud de la fosa del olécranon | 6 | |
| Altura de la fosa del olécranon | 3.7 | |
| Altura del foramen epicondilar | 2.8 | |
| Amplitud del foramen epicondilar | 1.4 | |
| Altura del epicóndilo medial | 6 | |
| Diámetro anteroposterior de la cabeza de la tróclea | 4.6 | |
| Diámetro anteroposterior del labio medial de la tróclea | 4.4 | |
| Ulna | S-CFD-070 | S-CFD-084 |
| Longitud total | 37.8 | – |
| Cabeza, amplitud anteroposterior | 5.3 | – |
| Cabeza, amplitud transversal | 4.1 | – |
| Amplitud máxima anteroposterior de la diáfisis |
5.7 | 5 |
| Amplitud transversal de la diáfisis | 2.6 | 2.6 |
| Amplitud anteroposterior del extremo distal | 8.4 | 8 |
| Amplitud transversal del extremo distal | 5.6 | 5.5 |
| P3 | P4 | M1 | M2 | |||||
|---|---|---|---|---|---|---|---|---|
| Spec. # | BL | MD | BL | MD | BL | MD | BL | MD |
| S-CFD-013 | 6.1 | 3.6 | 6.4 | 3.8 | 6.8 | 5.4 | 6.7 | 4.8 |
| Cendia 1* | 6.8 | 3.0 | 6.7 | 4.8 | 6.3 | 4.3 | ||
| MHD-01* | 6.1 | 3.6 | 6.6 | 3.6 | 7.1 | 5.3 | 6.8 | 4.8 |
| *medidas tomadas de Rosenberger et al. (2011:tabla 2). BL = amplitud bucolingual; MD = longitud mesiodistal. |
||||||||
| Húmero (S-CFD-108) | |
|---|---|
| Diáfisis, amplitud transversal | 10.1 |
| Diáfisis, amplitud anteroposterior | 7.2 |
| Amplitud máxima distal | 22.8 |
| Cabeza troclear, diámetro | 10 |
| Labio medial de la tróclea, diámetro | 9.2 |
| Amplitud de la superficie articular | 15.9 |
| Desviación posterior del epicóndilo medial | 86º |
| Ulna (S-CFD-095) | |
| Proceso del tríceps, altura sobre el olécranon (en vista anterior) |
8.7 |
| Altura de la muesca troclear, coronoide al olécranon | 7.9 |
| Amplitud de la muesca troclear | 8.7 |
| Parte superior de la diáfisis, amplitud transversal | 6 |
| Parte superior de la diáfisis, amplitud anteroposterior | 10.3 |
| Radio (S-CFD-090) | |
| Cabeza, amplitud mediolateral | 11.2 |
| Cabeza, amplitud anteroposterior | 9.8 |
| Amplitud anteroposterior del cuello | 6.7 |
| Amplitud transversal del cuello | 7.6 |
| Distancia entre la cabeza y el tubérculo | 10.4 |
| Fémur (S-CFD-095) | |
| Longitud total (como preservado) | 72 |
| Anchura de la diáfisis a la mitad | 9.3 |
| Amplitud de la diáfisis a la mitad | 8.4 |
| Amplitud de la diáfisis al nivel del trocánter menor | 13.9 |
ANEXO 3. FIGURAS DE ESPECÍMENES REPRESENTATIVOS
FIGURA 1. Elementos dentales y postcraneales de lagartos y cule- bras del Abrigo de Daniel (AD) y la Cueva Funeraria de Daniel (CFD). Dentario derecho (S-AD-001) de Anolis sp. en vistas, A, lingual, y, B, bucal; dentario derecho (S-CFD-016) de Anolis sp. en vistas, C, lingual, D, bucal, y, E, oclusal; dentarios derechos (S-CFD-038) de Anolis spp. en vistas, F-G, lingual, y, H-I, bucal; fémur izquierdo (S-CFD-071) de Anolis sp. en vistas, J, anterior, y, K, ventral; dentario derecho (S-AD- 003) de Comptus stenurus en vistas, L, lingual, M, bucal, and, N, oclusal; dentario derecho (S-CFD-017) de Cyclura cornuta en vistas, O, lingual, y P, bucal, views; vértebra torácica (S-CFD-126) de Cyclura cornuta en vistas, Q, anterior, y, R, lateral derecho; vértebra caudal (S-CFD-126) de Cyclura cornuta en vistas, S, anterior, y, T, lateral izquierda; vértebra troncal (S-CFD-058) de Haitiophis anomalus en vista, U, anterior, y, V, dorsal; vértebra troncal (S-CFD-127) de Chilabothrus striatus, en vista, W, anterior; vértebra troncal (S-CFD-126) de Chilabothrus striatus en vistas, X, anterior, y, Y, dorsal.
FIGURA 2. Elementos del caparazón y apendiculares de Chelonoidis spp. De la Cueva Funeraria de Daniel (CFD). Nucal (S-CFD-039) de Chelonoidis marcanoi, en vista dorsal, A; placa costal parcial (S-CFD-039) de Chelonoidis marcanoi, en vista dorsal, B; epiplastron derecho (S-CFD- 026) de Chelonoidis marcanoi, en vistas, ventral, C, y dorsal, D; ungual derecho (S-CFD-128) de Chelonoidis sp., en vistas, dorsal, E, y lateral, F; húmero derecho (S-CFD-139) de Chelonoidis marcanoi, en vistas, capitular, G, intertubercular, H, ulnar, I, y radial, J.
FIGURA 3. Elementos dentales y postcraneales de Acratocnus ye de la Cueva Funeraria de Daniel (CF). Caniniforme superior derecho (S-CFD-040), en vista lateral, A; caniniforme inferior izquierdo (S-CFD- 052), en vista lateral, B; vértebra torácica (S-CFD-041), en vista lateral izquierda, C; vértebra caudal (S-CFD-027), en vista dorsal, D; vértebra caudal (S-CFD-015), en vista dorsal, E; porción proximal de una ulna
derecha (S-CFD-052), en vista lateral, F; porción proximal y distal de un radio derecho (S-CFD-041), en vista lateral, G; metacarpal II y metacarpal III (S-CFD-004), en vista lateral, H; metacarpal III derecho (S-CFD-001), en vista lateral, I; metacarpal III izquierdo (S-CFD-032), en vista lateral, J; falanges de la mano o pié (S-CFD-015), en vista lateral o medial, K, extremo distal hacia el lado derecho; ungual izquierdo (S-CFD-015), en vista lateral, L; ungual izquierdo (S-CFD-032), en vista lateral, M; astrágalo derecho (S-CFD-129), en vistas, N, proximal, y, O, lateral; extremo distal de una fíbula izquierda (S-CFD-129), in vista lateral, P.
FIGURA 4. Elementos dentales y postcraneales de Neocnus spp. de la Cueva Funeraria de Daniel (CFD). Caniniforme inferior derecho (S-CFD-130) de Neocnus sp., en vistas, oclusal, A, y bucal, B; molariforme inferior izquierdo (S-CFD-130) de Neocnus sp., en vistas oclusal, C, y bucal, D; ungual izquierdo (S-CFD-130) de Neocnus sp., en vistas, dorsal, E, y lateral, F; húmero derecho parcial (S-CFD-051) de Neocnus sp., en vistas, anterior, G, posterior, H, y proximal, I; tercer molariforme supe- rior derecho (S-CFD-116) de Neocnus toupiti, en vistas, distal, J, bucal, K, y oclusal, L; fémur derecho parcial (S-CFD-028) de Neocnus toupiti, en vistas, anterior, M, y posterior, N; húmero distal derecho (S-CFD-002) de Neocnus toupiti en vistas, anterior, O, y posterior, P.
FIGURA 5. Elementos dentales y postcraneales de Parocnus serus de la Cueva Funeraria de Daniel (CF). Caniniforme superior derecho (S-CFD-046), en vista lateral, A; fragmento de mandíbula derecha (CF-UE17-F13), en vistas, lateral, B, y oclusal, C; atlas (S-CFD-046), en vista lateral derecha, D; unguales izquierdo, E, y derecho, F, (S-CFD- 046), en vistas lateral; fémur izquierdo (S-CFD-044), en vista anterior, G; fibula derecha (S-CFD-046), en vista medial, H.
FIGURA 6. Elementos craneales, mandibulares y dentales de roedores capromíinos y heteropsomíinos de la Cueva Funeraria de Daniel (CFD). dP4 derecho (S-CFD-118) de Plagiodontia araeum en vistas, oclusal, A, y mesial, B; dp4 izquierdo (S-CFD-010) de Plagiodontia
sp. en vista oclusal, C; m1 izquierdo (S-CFD-010) de Plagiodontia sp. en vista, oclusal, D; m2 izquierdo (S-CFD-020) de Plagiodontia cf. P. aedium en vista oclusal, E; mandíbula parcial derecha con m1 (S-CFD-033) de Plagiodontia cf. P. aedium, en vista dorsal/oclusal, F; mandíbula parcial izquierda (S-CFD-033) de Plagiodontia cf. P. aedium en vista dorsal, G; mandíbula parcial derecha (S-CFD-053) de Plagiodontia sp. en vista dorsal, H; maxilar izquierdo con dP4, M2-3 (S-CFD-019) de Hexolo- bodon phenax en vista ventral/oclusal, I; cráneo parcial con dP4, M1-3 derecho e izquierdo (S-CFD-030) de Hexolobodon phenax en vista ventral, J; mandíbula parcial izquierda, con incisivo, dp4, m1-3 (S-CFD-048) de Hexolobodon phenax en vistas dorsal/oclusal, K, y lateral, M; mandíbula derecha parcial con dp4, m1-3 (S-CFD-034) de Hexolobodon phenax en vistas dorsal/oclusal, L, y lateral, N; mandíbula parcial izquierda con dp4, m1-2 (invertida) y mandíbulas derechas parciales con dp4, m1-2 y dp4, m1, respectivamente (S-CFD-042) de Hexolobodon phenax en vistas dorsal/oclusal, O-Q, estos ejemplares representan distintas etapas de crecimiento, de más viejo (O) a más jóven (Q); mandíbula izquierda parcial con incisivo, dp4, m2-3 (S-CFD-012) de Isolobodon montanus en vista dorsal/oclusal, R; mandíbula derecha parcial con dp4, m1-3 (S-CFD-035) de Isolobodon montanus en vista dorsal/oclusal, S; mandí- bula parcial izquierda con incisivo, dp4, m1-3 (S-CFD-055) de Isolobodon portoricensis en vistas dorsal/oclusal, T, y lateral, U; mandíbula derecha con m2 (S-CFD-103) de Isolobodon portoricensis en vistas dorsal/oclusal, V, y lateral, W; mandíbula parcial izquierda (S-CFD-080) de Brotomys sp. en vista, dorsal, X, lateral, Y, y medial, Z.
FIGURA 7. Elementos postcraneales de roedores capromíinos de la Cueva Funeraria de Daniel (CFD). Húmero izquierdo (S-CFD-100) de Hexolobodon phenax en vista, anterior, A, posterior, B, lateral, C, y medial, D; húmero izquierdo (S-CFD-101) de Isolobodon sp. en vistas, anterior, E, posterior, F, lateral, G, y medial, H; ulna izquierda (S-CFD- 082) de Isolobodon sp. en vistas, lateral, I, y medial, J; fémur izquierdo de un capromíino grande, posiblemente Plagiodontia sp. (S-CFD-060) en vistas posterior, K, y anterior, L.
FIGURA 8. Elementos craneales, mandibulares y postcraneales de Quemisia gravis de la Cueva Funeraria de Daniel (CFD). Cráneo parcial (S-CFD-049) en vistas, lateral derecha, A, y ventral, B; incisivo supe- rior derecho (S-CFD-120) en vistas bucal, C, y distal, D; M1 izquierdo (S-CFD-120) en vista oclusal, E; M2 izquierdo (S-CFD-134) en vista oclusal, F; M2 derecho (S-CFD-008) en vistas bucal, G, y oclusal, H; mandíbula izquierda parcial (S-CFD-037) en vista oclusal, I; mandí- bula izquierda parcial (S-CFD-056) en vista oclusal, J; incisivo inferior izquierdo (S-CFD-068) en vistas, distal, K, y bucal, L; húmero izquierdo parcial (S-CFD-120) en vistas, anterior, M, y posterior, N; húmero derecho parcial (S-CFD-136) en vistas, anterior, O, y posterior, P; húmero derecho parcial (S-CFD-093) en vistas, anterior, Q, y posterior, R; fémur izquierdo (S-CFD-135) en vistas, anterior, S, y posterior, T.
FIGURA 9. Elementos craneales y postcraneales de solenodontes y primates del Abrigo de Daniel (AD) y de la Cueva Funeraria de Daniel (CFD). Cráneo parcial (S-AD-005) de Solenodon paradoxus, en vistas, ventral, A, dorsal, B, y lateral izquierda C; húmero parcial izquierdo (S-CFD-137) de Solenodon paradoxus, en vistas, anterior, D, y posterior, E; radio izquierdo (S-CFD-070) de Solenodon paradoxus, en vistas lateral, F, y medial, G,; radio derecho parcial (S-CFD-084) de Solenodon para- doxus, en vistas, medial, H, y lateral, I; fémur derecho (S-CFD-072) de Nesophontes sp., en vistas, anterior, J, y posterior, K; maxilar derecho (S-CFD-013) de Antillothrix bernensis, en vistas, lateral, L, y ventral, M; húmero izquierdo distal (S-CFD-108) de Antillothrix bernensis, en vistas, anterior, N, posterior, O, y distal, P; radio izquierdo proximal (S-CFD- 090) de Antillothrix bernensis, en vistas, lateral, Q, y anterior, R; ulna derecha parcial (S-CFD-095) de Antillothrix bernensis, en vistas, lateral, S, y medial, T; femur izquierdo parcial (S-CFD-095) de Antillothrix bernensis, en vistas, anterior, U, y posterior, V.
ANEXO 4. NÚMEROS DE ESPECÍMENES
| Specimen No. | Taxon | Locality | Unit/ Control No. |
Element(s) |
|---|---|---|---|---|
| S-AD-001 | Anolis sp. | Abrigo de Daniel, Samaná |
UE-2, área 1, control 036; funda 1 |
Right dentary |
| S-AD-002 | Anolis sp. | Abrigo de Daniel, Samaná |
UE-3, Área 3, control 019; funda 2 |
Right dentary |
| S-AD-003 | Comptus cf. C. stenurus |
Abrigo de Daniel, Samaná |
UE-3, Área 3, control 018; funda 2 |
Right dentary |
| S-AD-004 | Capromyinae | Abrigo de Daniel, Samaná |
UE-3, Área 3, control 020; funda 2 |
Proximal end of right femur; distal left femur |
| S-AD-005 | Solenodon paradoxus | Abrigo de Daniel, Samaná |
UE-3, área 3, control 022; funda 2 |
Partial skull |
| Specimen No. | Taxon | Locality | Unit/ Control No. |
Element(s) |
|---|---|---|---|---|
| S-CFD-001 | Acratocnus ye | Cueva Funeraria de Daniel, Samaná |
Unidad Superficie; funda 8 |
Right metacarpal 3 |
| S-CFD-002 | Neocnus toupiti | Cueva Funeraria de Daniel, Samaná |
Unidad Superficie; funda 8 |
Distal right fémur; anterior right rib |
| S-CFD-003 | Hexolobodon phenax | Cueva Funeraria de Daniel, Samaná |
Unidad Superficie; funda 8 |
Partial right mandible w/ dp4; partial skull (mostly maxillae) w/ left and right dP4 |
| S-CFD-004 | Acratocnus ye | Cueva Funeraria de Daniel, Samaná |
Unidad Superficie, control 062; funda 3 |
2 phalanges; right metacarpals II and III |
| S-CFD-005 | Plagiodontia sp. | Cueva Funeraria de Daniel, Samaná |
Unidad Superficie, control 002; funda 3 |
Upper right M2 or M3 |
| S-CFD-006 | Hexolobodon phenax | Cueva Funeraria de Daniel, Samaná |
Unidad Superficie, control 002; funda 3 |
Partial left mandible w/ m2 |
| S-CFD-007 | Capromyinae | Cueva Funeraria de Daniel, Samaná |
Unidad Superficie, control 003; funda 3 |
Distal right fémur |
| S-CFD-008 | Quemisia gravis | Cueva Funeraria de Daniel, Samaná |
Unidad Superficie, control 003; funda 3 |
Upper right M2 |
| Specimen No. | Taxon | Locality | Unit/ Control No. |
Element(s) |
|---|---|---|---|---|
| S-CFD-009 | Capromyinae | Cueva Funeraria de Daniel, Samaná |
UE-4; funda 9 |
1 partial skull; 2 sacra |
| S-CFD-010 | Plagiodontia sp. | Cueva Funeraria de Daniel, Samaná |
UE-4; funda 9 |
Left dp4 and m1 |
| S-CFD-011 | Hexolobodon phenax | Cueva Funeraria de Daniel, Samaná |
UE-4; funda 9 |
Left maxilla w/ dP4, M1-3; left mandible w/ m1-2; left mandible w/ dp4, m2; left mandible w/ dp4, m1-3 |
| S-CFD-012 | Isolobodon montanus | Cueva Funeraria de Daniel, Samaná |
UE-4; funda 9 |
Left mandible w/ incisor, dp4, m2-3 |
| S-CFD-013 | Antillothrix bernensis | Cueva Funeraria de Daniel, Samaná |
UE-4; funda 9 |
Right maxilla w/ P3-4, M1-2 |
| S-CFD-014 | Cyclura cornuta | Cueva Funeraria de Daniel, Samaná |
UE-6, control 028; funda 4 |
Right ilium |
| S-CFD-015 | Acratocnus ye | Cueva Funeraria de Daniel, Samaná |
UE-6, control 028; funda 4 |
1 right metacarpal III; 1 left phalanx; 3 right phalanges; left and right ungual phalanges; 1 caudal vertebra |
| S-CFD-016 | Anolis sp. | Cueva Funeraria de Daniel, Samaná |
UE-6; control 030; Funda 5 |
Right dentary |
| Specimen No. | Taxon | Locality | Unit/ Control No. |
Element(s) |
|---|---|---|---|---|
| S-CFD-017 | Cyclura cornuta | Cueva Funeraria de Daniel, Samaná |
UE-6, control 031; funda 5 |
Partial right dentary |
| S-CFD-018 | Capromyinae | Cueva Funeraria de Daniel, Samaná |
UE-6, control 063; funda 5 |
2 distal right femora |
| S-CFD-019 | Hexolobodon phenax | Cueva Funeraria de Daniel, Samaná |
UE-6, control 027; funda 5 |
Right maxilla w/ dP4, M2-3; right M3 |
| S-CFD-020 | Plagiodontia cf. P. aedium |
Cueva Funeraria de Daniel, Samaná |
UE-6, control 027; funda 5 |
Left m1 or m2 |
| S-CFD-021 | Quemisia gravis | Cueva Funeraria de Daniel, Samaná |
UE-6, control 027; funda 5 |
Right m2 |
| S-CFD-022 | Quemisia gravis | Cueva Funeraria de Daniel, Samaná |
UE-6, control 063; funda 5 |
Distal right femur |
| S-CFD-023 | Capromyinae | Cueva Funeraria de Daniel, Samaná |
UE-7; funda 10 |
Proximal right femur |
| S-CFD-024 | Quemisia gravis | Cueva Funeraria de Daniel, Samaná |
UE-7; funda 10 |
Proximal right femur |
| S-CFD-025 | Anolis sp. | Cueva Funeraria de Daniel, Samaná |
UE-8, control 045; funda 6 |
Right dentary |
| S-CFD-026 | Chelonoidis marcanoi | Cueva Funeraria de Daniel, Samaná |
UE-8, control 039; funda 6 |
Right epiplastron |
| Specimen No. | Taxon | Locality | Unit/ Control No. |
Element(s) |
|---|---|---|---|---|
| S-CFD-027 | Acratocnus ye | Cueva Funeraria de Daniel, Samaná |
UE-8, control 040; funda 6 |
1 caudal vertebra; 1 proximal end of right radius; 1 ungual phalanx; 1 manual 2nd digit; 2 left metacarpal II; 1 partial ungual phalanx |
| S-CFD-028 | Neocnus sp. | Cueva Funeraria de Daniel, Samaná |
UE-8, control 040; funda 6 |
Right femur (missing epiphyses) |
| S-CFD-029 | Plagiodontia sp. | Cueva Funeraria de Daniel, Samaná |
UE-8, control 044; funda 6 |
Lower left incisor |
| S-CFD-030 | Hexolobodon phenax | Cueva Funeraria de Daniel, Samaná |
UE-8, control 044; funda 6 |
1 partial skull; 2 left mandibles; 1 upper left incisor; 1 lower left molar; 1 lower right incisor; 1 lower left incisor |
| S-CFD-031 | Cyclura cornuta | Cueva Funeraria de Daniel, Samaná |
UE-9, control 052; funda 7 |
Right dentary |
| S-CFD-032 | Acratocnus ye | Cueva Funeraria de Daniel, Samaná |
UE-9, control 055; funda 7 |
2 left, 1 right phalanx; 1 left ungual; 1 left metacarpal III; 1 lower left caniniform |
| Specimen No. | Taxon | Locality | Unit/ Control No. |
Element(s) |
|---|---|---|---|---|
| S-CFD-033 | Plagiodontia cf. P. aedium |
Cueva Funeraria de Daniel, Samaná |
UE-9, control 054; funda 7 |
1 left edentulous mandible; 1 right edentulous mandible; 1 partial right mandible w/ m1 |
| S-CFD-034 | Heloxobodon phenax | Cueva Funeraria de Daniel, Samaná |
UE-9, control 054; funda 7 |
1 partial skull w/ left dP4, M2-3, right M2-3; 1 right mandible w/ dp4, m1; 1 right mandible w/ dp4, m1-3; 1 left mandible w/ dp4, m1; 2 left mandibles w/ dp4, m1-2; 2 right lower incisors |
| S-CFD-035 | Isolobodon montanus | Cueva Funeraria de Daniel, Samaná |
UE-9, control 054; funda 7 |
Right mandible w/ dp4, m1-3 |
| S-CFD-036 | Isolobodon portoricensis |
Cueva Funeraria de Daniel, Samaná |
UE-9, control 054; funda 7 |
Left lower dp4 |
| S-CFD-037 | Quemisia gravis | Cueva Funeraria de Daniel, Samaná |
UE-9, control 054; funda 7 |
Left mandible w/ incisor, dp4, m1-2 |
| S-CFD-038 | Anolis sp. | Cueva Funeraria de Daniel, Samaná |
UE-9; funda 11 |
2 right dentaries |
| S-CFD-039 | Chelonoidis marcanoi | Cueva Funeraria de Daniel, Samaná |
UE-9; funda 11 |
Nuchal and costal plates |
| Specimen No. | Taxon | Locality | Unit/ Control No. |
Element(s) |
|---|---|---|---|---|
| S-CFD-040 | Acratocnus ye | Cueva Funeraria de Daniel, Samaná |
UE-9; funda 11 |
1 upper right caniniform; 1 right ungual phalanx; 1 2nd phalanx |
| S-CFD-041 | Acratocnus ye | Cueva Funeraria de Daniel, Samaná |
UE-9; funda 11 |
1 partial left ulna; 1 vertebra; 1 right radius (proximal and distal ends); 1 left rib |
| S-CFD-042 | Hexolobodon phenax | Cueva Funeraria de Daniel, Samaná |
UE-9; funda 11 |
1 partial skull w/ left M1; maxillae w/ left dP4; 1 left maxilla; 1 left m2; 5 left mandibles; 5 right mandibles |
| S-CFD-043 | Isolobodon sp. | Cueva Funeraria de Daniel, Samaná |
UE-9; funda 11 |
Left mandible w/ m2-3 |
| S-CFD-044 | Parocnus serus | Cueva Funeraria de Daniel, Samaná |
UE-10; funda 12 |
Nearly complete left femur |
| S-CFD-045 | Hexolobodon phenax | Cueva Funeraria de Daniel, Samaná |
UE-10; funda 12 |
Left mandible w/ incisor, dp4, m1-3 |
| Specimen No. | Taxon | Locality | Unit/ Control No. |
Element(s) |
|---|---|---|---|---|
| S-CFD-046 | Parocnus serus | Cueva Funeraria de Daniel, Samaná |
UE-17; funda 13 |
1 upper right caniniform; 1 fragment of right mandible; 1 axis; 1 cervical vertebra; 1 caudal vertebra; 1 left, 1 right ungual phalanx; 1 first phalanx; 1 proximal right fibula; 1 proximal right radius; 1 proximal left radius |
| S-CFD-047 | Plagiodontia sp. | Cueva Funeraria de Daniel, Samaná |
UE-17; funda 13 |
Right M1 or M2 |
| S-CFD-048 | Hexolobodon phenax | Cueva Funeraria de Daniel, Samaná |
UE-17; funda 13 |
1 partial skull w/ right dP4, M1-2; 3 partial left mandibles; 3 partial right mandibles |
| S-CFD-049 | Quemisia gravis | Cueva Funeraria de Daniel, Samaná |
UE-17; funda 13 |
Anterior part of skull w/ right dP4, M1, left M1 |
| S-CFD-050 | Cyclura cornuta | Cueva Funeraria de Daniel, Samaná |
UE-18; funda 14 |
Right pelvis |
| S-CFD-051 | Neocnus sp. | Cueva Funeraria de Daniel, Samaná |
UE-18; funda 14 |
Proximal half of right humerus |
| Specimen No. | Taxon | Locality | Unit/ Control No. |
Element(s) |
|---|---|---|---|---|
| S-CFD-052 | Acratocnus ye | Cueva Funeraria de Daniel, Samaná |
UE-18; funda 14 |
1 upper right caniniform; 1 lower left caniniform; proximal end of right ulna; partial right innominate; proximal epiphysis of right tibia; distal right fibula; right calcaneus |
| S-CFD-053 | Plagiodontia sp. | Cueva Funeraria de Daniel, Samaná |
UE-18; funda 14 |
1 upper right M1 or M2; 1 edentulous right mandible |
| S-CFD-054 | Hexolobodon phenax | Cueva Funeraria de Daniel, Samaná |
UE-18; funda 14 |
1 partial skull w/ right dP4 and left dP4, M1-2; 1 partial left mandible w/ dp4, m1-2; 1 edentulous right mandible; 1 partial right mandible w/ incisor, dp4, m1-3; 1 partial left mandible w/ dp4 |
| S-CFD-055 | Isolobodon portoricensis |
Cueva Funeraria de Daniel, Samaná |
UE-18; funda 14 |
Partial left mandible w/ incisor, dp4, m1-3 |
| S-CFD-056 | Quemisia gravis | Cueva Funeraria de Daniel, Samaná |
UE-18; funda 14 |
Partial left mandible w/ dp4, m1 |
| Specimen No. | Taxon | Locality | Unit/ Control No. |
Element(s) |
|---|---|---|---|---|
| S-CFD-057 | Cyclura cornuta | Cueva Funeraria de Daniel, Samaná |
UE-6; Control 031/ 2022 |
6 thoracic & 1 caudal vertebrae |
| S-CFD-058 | Haitiophis anomalus | Cueva Funeraria de Daniel, Samaná |
UE-6; Control 031/ 2022 |
1 trunk vertebra |
| S-CFD-059 | Chelonoidis sp. | Cueva Funeraria de Daniel, Samaná |
UE-6; Control 026/ 2022 |
Left peripheral plate, partial costal plates and other shell fragments |
| S-CFD-060 | Capromyinae | Cueva Funeraria de Daniel, Samaná |
UE-6; Control 035/ 2022 |
2 left, 1 right femora |
| S-CFD-061 | Capromyinae | Cueva Funeraria de Daniel, Samaná |
UE-6; Control 035/ 2022 |
Right and left distal humeri |
| S-CFD-062 | Capromyinae | Cueva Funeraria de Daniel, Samaná |
UE-6; Control 035/ 2022 |
5 left, 4 right innominates |
| S-CFD-063 | Capromyinae | Cueva Funeraria de Daniel, Samaná |
UE-6; Control 035/ 2022 |
2 left proximal femora |
| S-CFD-064 | Hexolobodon phenax | Cueva Funeraria de Daniel, Samaná |
UE-6; Control 035/ 2022 |
2 left, 1 right humeri |
| S-CFD-065 | Isolobodon sp. | Cueva Funeraria de Daniel, Samaná |
UE-6; Control 035/ 2022 |
Left and right humeri |
| S-CFD-066 | Isolobodon sp. | Cueva Funeraria de Daniel, Samaná |
UE-6; Control 035/ 2022 |
Partial left humerus |
| Specimen No. | Taxon | Locality | Unit/ Control No. |
Element(s) |
|---|---|---|---|---|
| S-CFD-067 | Isolobodon sp. | Cueva Funeraria de Daniel, Samaná |
UE-6; Control 035/ 2022 |
Proximal right femur |
| S-CFD-068 | Quemisia gravis | Cueva Funeraria de Daniel, Samaná |
UE-6; Control 035/ 2022 |
Lower left incisor |
| S-CFD-069 | Nesophontes sp. | Cueva Funeraria de Daniel, Samaná |
UE-6; Control 035/ 2022 |
Right ulna |
| S-CFD-070 | Solenodon paradoxus | Cueva Funeraria de Daniel, Samaná |
UE-6; Control 035/ 2022 |
Left radius |
| S-CFD-071 | Anolis sp. | Cueva Funeraria de Daniel, Samaná |
UE-8; Control 049/ 2022 |
3 left femora, 1 right tibia |
| S-CFD-072 | Nesophontes sp. | Cueva Funeraria de Daniel, Samaná |
UE-8; Control 049/ 2022 |
Right femur |
| S-CFD-073 | Cyclura cornuta | Cueva Funeraria de Daniel, Samaná |
UE-8; Control 041/ 2022 |
Innominate; 6 thoracic, 1 caudal vertebrae |
| S-CFD-074 | Chelonoidis sp. | Cueva Funeraria de Daniel, Samaná |
UE-8; Control 039/ 2022 |
Multiple shell fragments, including parts of costals |
| S-CFD-075 | Acratocnus ye | Cueva Funeraria de Daniel, Samaná |
UE-8; 2022 | Molariform |
| S-CFD-076 | Acratocnus ye | Cueva Funeraria de Daniel, Samaná |
UE-8; 2022 | 2 caudal vertebrae |
| Specimen No. | Taxon | Locality | Unit/ Control No. |
Element(s) |
|---|---|---|---|---|
| S-CFD-077 | Capromyinae | Cueva Funeraria de Daniel, Samaná |
UE-8; 2022 | 5 left, 5 right femora |
| S-CFD-078 | Capromyinae | Cueva Funeraria de Daniel, Samaná |
UE-8; 2022 | 7 left, 5 right femora; 2 left ulnae |
| S-CFD-079 | Isolobodon portoricensis |
Cueva Funeraria de Daniel, Samaná |
UE-8; Control 047/ 2022 |
Edentulous left mandible |
| S-CFD-080 | Brotomys sp. | Cueva Funeraria de Daniel, Samaná |
UE-8; Control 047/ 2022 |
Partial left mandible |
| S-CFD-081 | Capromyinae | Cueva Funeraria de Daniel, Samaná |
UE-8; 2022 | 3 left, 1 right femora; 1 right innominate; 1 left humerus |
| S-CFD-082 | Isolobodon sp. | Cueva Funeraria de Daniel, Samaná |
UE-8; 2022 | Left ulna |
| S-CFD-083 | Acratocnus ye | Cueva Funeraria de Daniel, Samaná |
UE-8; Control 048/ 2022 |
Fragment of right mandible |
| S-CFD-084 | Solenodon paradoxus | Cueva Funeraria de Daniel, Samaná |
UE-8; Control 048/ 2022 |
Right radius |
| S-CFD-085 | Chilabothrus striatus | Cueva Funeraria de Daniel, Samaná |
UE-9; Control 060/ 2022 |
Trunk vertebra |
| S-CFD-086 | Acratocnus sp. | Cueva Funeraria de Daniel, Samaná |
UE-9; Control 055/ 2022 |
Right tibia (proximal epiphysis) |
| Specimen No. | Taxon | Locality | Unit/ Control No. |
Element(s) |
|---|---|---|---|---|
| S-CFD-087 | Megalocnidae | Cueva Funeraria de Daniel, Samaná |
UE-9; Control 056/ 2022 |
3 thoracic vertebrae |
| S-CFD-088 | Acratocnus ye | Cueva Funeraria de Daniel, Samaná |
UE-9; Control 056/ 2022 |
2 caudal verterbrae |
| S-CFD-089 | Capromyinae | Cueva Funeraria de Daniel, Samaná |
UE-9; Control 056/ 2022 |
Left upper incisor; right femur; 5 tibiae |
| S-CFD-090 | Antillothrix bernensis |
Cueva Funeraria de Daniel, Samaná |
UE-9; Control 056/ 2022 |
Proximal radius |
| S-CFD-091 | Capromyinae | Cueva Funeraria de Daniel, Samaná |
UE-9; Control 053/ 2022 |
8 left, 12 right humeri; 4 right, 1 left ulnae; 2 left innominates; 8 right, 5 left femora; 9 left, 9 right tibiae |
| S-CFD-092 | Isolobodon montanus |
Cueva Funeraria de Daniel, Samaná |
UE-9; Control 054/ 2022 |
Partial left and right mandibles |
| S-CFD-093 | Quemisia gravis | Cueva Funeraria de Daniel, Samaná |
UE-9; Control 058/ 2022 |
Partial right humerus |
| S-CFD-094 | Capromyinae | Cueva Funeraria de Daniel, Samaná |
UE-9; Control 053/ 2022 |
4 left, 3 right humeri; 2 left, 2 right innominates; 12 left, 5 right femora; 4 left, 5 right tibiae |
| Specimen No. | Taxon | Locality | Unit/ Control No. |
Element(s) |
|---|---|---|---|---|
| S-CFD-095 | Antillothrix bernensis | Cueva Funeraria de Daniel, Samaná |
UE-9; Control 053/ 2022 |
Proximal right ulna; partial right femur |
| S-CFD-096 | Tyto sp. | Cueva Funeraria de Daniel, Samaná |
UE- Superficie/ 2023 |
Coracoid |
| S-CFD-097 | Capromyinae | Cueva Funeraria de Daniel, Samaná |
UE- Superficie; Control 002/2023 |
Partial mandible; 2 lower right, 1 upper left incisor; 1 left, 1 right innominate; 2 partial left humeri; 1 partial ulna; 3 right, 4 left partial femora |
| S-CFD-098 | Plagiodontia sp. | Cueva Funeraria de Daniel, Samaná |
UE- Superficie; Control 002/2023 |
Partial edentulous mandible |
| S-CFD-099 | Isolobodon portoricensis |
Cueva Funeraria de Daniel, Samaná |
UE- Superficie; Control 002/2023 |
4 left, 1 right edentulous mandibles |
| S-CFD-100 | Hexolobodon phenax | Cueva Funeraria de Daniel, Samaná |
UE-4/2023 | Left humerus |
| S-CFD-101 | Isolobodon sp. | Cueva Funeraria de Daniel, Samaná |
UE-4, Control 021/ 2023 |
Left humerus |
| S-CFD-102 | Isolobodon portoricensis |
Cueva Funeraria de Daniel, Samaná |
UE-4/2023 | Upper right dP4 |
| Specimen No. | Taxon | Locality | Unit/ Control No. |
Element(s) |
|---|---|---|---|---|
| S-CFD-103 | Isolobodon portoricensis |
Cueva Funeraria de Daniel, Samaná |
UE-4, Control 021/ 2023 |
Right mandible w/ m2 |
| S-CFD-104 | Capromyinae | Cueva Funeraria de Daniel, Samaná |
UE-7/2023 | 1 upper right incisor; 1 lower right incisor; 2 right calcanei; 2 right, 1 left innominate; 7 right, 15 left femora; 13 left, 12 right tibiae; 3 left, 1 right ulnae; 7 right, 6 left humeri |
| S-CFD-105 | Anolis sp. | Cueva Funeraria de Daniel, Samaná |
UE-7/2023 | Left dentary; right femur |
| S-CFD-106 | Acratocnus ye | Cueva Funeraria de Daniel, Samaná |
UE-7/2023 | Lower right caniniform |
| S-CFD-107 | Quemisia gravis | Cueva Funeraria de Daniel, Samaná |
UE-7/2023 | Right lower incisor |
| S-CFD-108 | Antillothrix bernensis | Cueva Funeraria de Daniel, Samaná |
UE-7/2023 | Distal left humerus |
| S-CFD-109 | Capromyinae | Cueva Funeraria de Daniel, Samaná |
UE-9/2023 | 6 right, 7 left lower incisors |
| S-CFD-110 | Capromyinae | Cueva Funeraria de Daniel, Samaná |
UE-9/2023 | 14 right, 13 left upper incisors |
| Specimen No. | Taxon | Locality | Unit/ Control No. |
Element(s) |
|---|---|---|---|---|
| S-CFD-111 | Capromyinae | Cueva Funeraria de Daniel, Samaná |
UE-9/2023 | Multiple postcranial elements |
| S-CFD-112 | Anolis spp. | Cueva Funeraria de Daniel, Samaná |
UE-9/2023 | 3 left, 1 right dentary |
| S-CFD-113 | Cyclura cornuta | Cueva Funeraria de Daniel, Samaná |
UE-9/2023 | 2 posterior thoracic, 1 caudal vertebra |
| S-CFD-114 | Chilabothrus striatus | Cueva Funeraria de Daniel, Samaná |
UE-9/2023 | 2 mid-trunk vertebrae |
| S-CFD-115 | Acratocnus ye | Cueva Funeraria de Daniel, Samaná |
UE-9/2023 | Upper left molariform |
| S-CFD-116 | Neocnus toupiti | Cueva Funeraria de Daniel, Samaná |
UE-9/2023 | Upper right molariform |
| S-CFD-117 | Plagiodontia sp. | Cueva Funeraria de Daniel, Samaná |
UE-9/2023 | Upper left M2 or M3 |
| S-CFD-118 | Plagiodontia araeum | Cueva Funeraria de Daniel, Samaná |
UE-9/2023 | Upper right dP4 |
| S-CFD-119 | Hexolobodon phenax | Cueva Funeraria de Daniel, Samaná |
UE-9/2023 | 1 right lower dp4; 1 right lower molar; 1 right upper dP4; 1 right upper M2 |
| S-CFD-120 | Quemisia gravis | Cueva Funeraria de Daniel, Samaná |
UE-9/2023 | 1 upper right incisor; upper left M1 or M2; distal left humerus |
| Specimen No. | Taxon | Locality | Unit/ Control No. |
Element(s) |
|---|---|---|---|---|
| S-CFD-121 | Capromyinae | Cueva Funeraria de Daniel, Samaná |
UE-10/2023 | 3 upper right incisors; 1 lower left, 1 lower right incisors; 1 atlas vertebra; 1 right innominate; 3 left tibiae; 3 right humeri; 1 right ulna; 4 left, 4 right femora |
| S-CFD-122 | Acratocnus ye | Cueva Funeraria de Daniel, Samaná |
UE-10/2023 | 1 caudal vertebra |
| S-CFD-123 | Neocnus sp. | Cueva Funeraria de Daniel, Samaná |
UE-10/2023 | Partial molariform |
| S-CFD-124 | Plagiodontia sp. | Cueva Funeraria de Daniel, Samaná |
UE-10/2023 | Right upper M1 or M2 |
| S-CFD-125 | Capromyinae | Cueva Funeraria de Daniel, Samaná |
UE-17/2023 | 2 right innominates; 11 left, 6 right humeri; 14 left, 8 right tibiae; 11 left, 12 right femora |
| S-CFD-126 | Cyclura cornuta | Cueva Funeraria de Daniel, Samaná |
UE-17/2023 | 1 posterior thoracic, 2 caudal vertebrae |
| S-CFD-127 | Chilabothrus striatus | Cueva Funeraria de Daniel, Samaná |
UE-17/2023 | 2 mid-trunk vertebrae |
| Specimen No. | Taxon | Locality | Unit/ Control No. |
Element(s) |
|---|---|---|---|---|
| S-CFD-128 | Chelonoidis sp. | Cueva Funeraria de Daniel, Samaná |
UE-17/2023 | Partial left humerus; left 1st digit distal phalanx |
| S-CFD-129 | Acratocnus ye | Cueva Funeraria de Daniel, Samaná |
UE-17/2023 | Right astragalus; distal end of left fibula; 1st phalanx of manual digit; partial ungual phalanx; caudal vertebra |
| S-CFD-130 | Neocnus sp. | Cueva Funeraria de Daniel, Samaná |
UE-17/2023 | Lower right caniniform; lower left 1st molariform; left ungual phalanx |
| S-CFD-131 | Capromyinae | Cueva Funeraria de Daniel, Samaná |
UE-17/2023 | 2 skull fragments; 1 upper left incisor; 4 left, 1 right partial mandible; 3 left, 5 right lower incisors; 1 left calcaneus |
| S-CFD-132 | Hexolobodon phenax | Cueva Funeraria de Daniel, Samaná |
UE-17/2023 | Left mandible w/ dp4, m1; left dp4; right dp4 |
| S-CFD-133 | Isolobodon montanus | Cueva Funeraria de Daniel, Samaná |
UE-17/2023 | Right mandible (edentulous) |
| S-CFD-134 | Quemisia gravis | Cueva Funeraria de Daniel, Samaná |
UE-17/2023 | Upper left dP4 |
| Specimen No. | Taxon | Locality | Unit/ Control No. |
Element(s) |
|---|---|---|---|---|
| S-CFD-135 | Quemisia gravis | Cueva Funeraria de Daniel, Samaná |
UE-17/2023 | 1 complete femur; 2 partial left femora |
| S-CFD-136 | Quemisia gravis | Cueva Funeraria de Daniel, Samaná |
UE-17/2023 | Partial right humerus |
| S-CFD-137 | Solenodon paraxodus | Cueva Funeraria de Daniel, Samaná |
UE-17/2023 | Distal left humerus |
| S-CFD-138 | Capromyinae | Cueva Funeraria de Daniel, Samaná |
UE-18/2023 | 1 left, 4 right innominates; 1 left, 1 right calcanei; 4 left, 1 right ulnae; 3 radii; 7 left, 6 right tibiae; 5 left, 7 right femora |
| S-CFD-139 | Chelonoidis marcanoi | Cueva Funeraria de Daniel, Samaná |
UE-18/2023 | Right humerus; shell fragments |
| S-CFD-140 | Anolis sp. | Cueva Funeraria de Daniel, Samaná |
UE-18/2023 | Right dentary; left and right partial femora |
| S-CFD-141 | Cyclura cornuta | Cueva Funeraria de Daniel, Samaná |
UE-18/2023 | 5 thoracic, 1 caudal vertebrae |
| S-CFD-142 | Chilabothrus striatus | Cueva Funeraria de Daniel, Samaná |
UE-18/2023 | 2 trunk, 1 caudal vertebrae |
| S-CFD-143 | Haitiophis anomalus | Cueva Funeraria de Daniel, Samaná |
UE-18/2023 | 1 trunk vertebra |
| Specimen No. | Taxon | Locality | Unit/Control No. | Element(s) |
|---|---|---|---|---|
| S-CFD-144 | Passeriformes | Cueva Funeraria de Daniel, Samaná |
UE-18/2023 | 1 left humerus; 1 right distal humerus |
| S-CFD-145 | Anolis sp. | Cueva Funeraria de Daniel, Samaná |
UE-18 [microfauna]/2023 |
1 right femur; 1 partial left femur; 1 partial right humerus; 1 partial left dentary; 1 right dentary; 2 partial maxillae |
| S-CFD-146 | Acratocnus cf. A. ye | Cueva Funeraria de Daniel, Samaná |
UE-18/2023 | Distal metacarpal; ungual phalanx |
| S-CFD-147 | Acratocnus ye | Cueva Funeraria de Daniel, Samaná |
UE-18/2023 | 2 molariforms |
| S-CFD-148 | Capromyinae | Cueva Funeraria de Daniel, Samaná |
UE-18 [microfauna]/2023 |
1 bulla; 2 partial left mandible; 1 partial left maxilla; 1 premaxilla; 7 upper, 1 lower incisors; 3 partial incisors |
| S-CFD-149 | Plagiodontia sp. | Cueva Funeraria de Daniel, Samaná |
UE-18 [microfauna]/2023 |
Right upper M1 or M2 |
| S-CFD-150 | Colubridae | Cueva Funeraria de Daniel, Samaná |
UE-18 [microfauna]/2023 |
Trunk vertebra |
| S-CFD-151 | Isolobodon portoricensis |
Cueva Funeraria de Daniel, Samaná |
UE-18 [microfauna]/2023 |
Left lower dp4 |
| S-CFD-152 | Isolobodon sp. | Cueva Funeraria de Daniel, Samaná |
UE-18 [microfauna]/2023 |
Lower right molar |