
Resumen
En el trabajo que presentamos se exponen las conclusiones del estudio de la arqueofauna recuperada en el sitio arqueológico de El Francés durante las campañas de 2019 y 2020. Por un lado presentamos un panorama general de las especies animales que se desarrollaron en el lugar durante el tiempo que permaneció habitado desde el siglo V A.D. hasta el siglo XII A.D. Por otro lado se identifican las especies que fueron consumidas en cada uno de los tres niveles arqueológicos diferentes identificados: saladoide, cuevas, cuevas y ciguoide y ciguoide y chicoide.
Introducción
El sitio El Francés se encuentra en la costa este de la península de Samaná en la República Dominicana. Las excavaciones se realizaron en los años 2018 al 2021, por el arqueólogo Adolfo José López Belando, patrocinados por Guahayona Institute.
El yacimiento arqueológico está localizado en la intersección de la carretera # 5 y la calle El Francés, aproximadamente a 400 metros al sur de Punta Chiva y cerca de 60 metros del mar Atlántico. El litoral costero es uno pedregoso y hacia el oeste se encuentran suaves colinas y pequeñas cañadas que ocupan gran parte de la península. Para el poblado indígena establecido en el sitio El Francés, Punta Chiva significaba una playa tranquila y protegida del embate de las fuertes marejadas del Océano Atlántico.
Algunas de las pequeñas caletas localizadas inmediatamente al sur del sitio arqueológico debieron tener áreas de mangle, como también la debió tener Punta Chiva, en su área resguardada. Cercano al lugar se encuentra una cañada activa de agua dulce que posiblemente en tiempos pasados debió ser una pequeña quebrada en propiedad.
Las áreas de pesca propicias se encuentran hacia el sur de la península de Samaná y al norte de la provincia de Higüey. En ambos lados de la bahía y en particular en el sur se hallan innumerables bajos arenosos y coralinos además de islotes y cayos. Esta bahía mantiene aún un inmenso y tupido manglar circunvalar, muy favorable para la vida y crianza de muchas especies de peces, aves, reptiles, moluscos y crustáceos. Es un medio ambiente idílico por su amplia y variada extensión geográfica y la increíble abundancia de recursos alimenticios que brinda el lugar.
El sitio fue excavado por el arqueólogo Adolfo López Belando, quien realizó tres campañas de excavación entre los años 2018 al 2021. Excavaron trece cortes, cuyo material corresponde a las culturas indígenas saladoide hasta el periodo chicoide. El sitio está compuesto por basureros que incluye enterramientos dispersos entre el material cultural.
Metodología
El análisis del material fáunico corresponde a cinco cortes designados como 8, 10, 11, 12 y 13. El estudio fáunico vertebrado e invertebrado crustáceo fue realizado en su totalidad por la autora que suscribe este informe, utilizando su colección sinóptica personal y la colección de invertebrados del Centro de Investigaciones Arqueológicas de la Universidad de Puerto Rico, Recinto de Río Piedras.
Antes de iniciar el análisis, el material fue lavado ya que estaba cubierto de un barro rojo de alta plasticidad que impedía su identifi- cación exacta. El lavado no pudo remover todo el barro del interior de algunos huesos lo cual afectó el peso de algunas de las muestras. Además, notamos que aproximadamente el 40% del material fáunico exhibe adherencias calcáreas notables que no pudieron ser removidas del hueso.
El material está muy fragmentado como consecuencia de haber formado parte de un basurero donde descartaron los deshechos a la intemperie. No obstante, el estado general de conservación del material óseo es lo suficientemente razonable para permitir una identificación precisa, al menos hasta el nivel de género.
En la Tabla 1 presentamos los resultados del análisis del material fáunico vertebrado e invertebrado, que incluye la identificación de cada especie taxonómica o Taxón, desglosados por cada unidad estratigráfica de cada corte y en algunos casos contiene su vinculación cultural. Se intentó identificar el material de la colección a nivel de especie en la medida de lo posible y según la integridad de cada hueso. Incluye esta tabla el número de huesos de cada especie identificada (NISP inglés), el peso en gramos y el número mínimo de individuos (NMI) y su porciento. El NMI representa los individuos identificados de cada especie descrita.
La Tabla 2 muestra la lista general de las especies identificadas del sitio El Francés y los nombres comunes de cada especie o taxón, además de los totales de cada renglón analítico. Esta tabla permite ver en su conjunto el muestrario fáunico del sitio arqueológico.
En la Tabla 3 ofrecemos los resultados del análisis de los ambientes naturales (Hábitats) ocupados por las especies identificadas en este estudio. La Tabla 4 contiene los resultados de las modificaciones óseas observadas en algunos de los huesos de esta colección.
Las Tablas 5, 6 y 7 representan el listado de material fáunico asociado a niveles culturales identificados. La Tabla 5 corresponde al Nivel 1 compuesto de material cultural ciguoide y proto-chicoide; la Tabla 6 al Nivel 2 asociado a las culturas cuevas y ciguoide y la Tabla 7 al Nivel 3 representado por la cultura saladoide cedrosan temprana.
Los niveles superficiales de los cortes 11, 12 y 13 están revueltos y no admiten identificación cultural ya que según el Arq. A. López “hay material mezclado de varios estratos” y no se le puede asignar una determinada cultura al material asociado, en este caso la fauna. No obstante, la Tabla 1 contiene toda la información de todos los cortes con identificación cultural y los revueltos.
Resultados
El relativo buen estado de conservación de los restos óseos de estos cinco cortes ha permitido identificar un total de 3,420 restos vertebrados y 383 restos de invertebrados crustáceos. Este resultado demuestra que el sitio El Francés cumple con los requisitos mínimos establecidos para el estudio fáunico del área del Caribe, donde se considera aceptable un muestrario de 1,200 y 200 individuos como necesario para un resultado confiable (Wing y Brown, 1979). En este estudio incluimos todo el material fáunico sometido que incluye los niveles estratigráficos revueltos.
El 78% de la muestra analizada (basado en el NMI) corresponde a la fauna de origen vertebrado mientras que el 22% lo componen los restos invertebrados de crustáceos. El 82% de la muestra corresponde a la fauna marina compuesta por los peces, las tortugas marinas, los manatíes y los cetáceos. De esta cifra, los peces aportaron el 73% de la fauna y constituyen los vertebrados de mayor representación en la colección.
Entre las especies de peces de mayor utilización se destacan el peje puerco (Balistes vetula) seguido por el jurel (Caranx hippos), el robalo (Centropomus undecimalis), el loro (Sparisoma viride) y el cotorro (Scarus guacamaia).
Las tortugas marinas son el renglón de mayor consumo después de los peces marinos. La fragmentación del material no permitió una identificación a nivel de especie, aunque logramos identificar una especie, el carey, Eretmochelys imbricata. Podemos indicar que las otras especies utilizadas debieron corresponder a Chelonia mydas, y Careta careta.
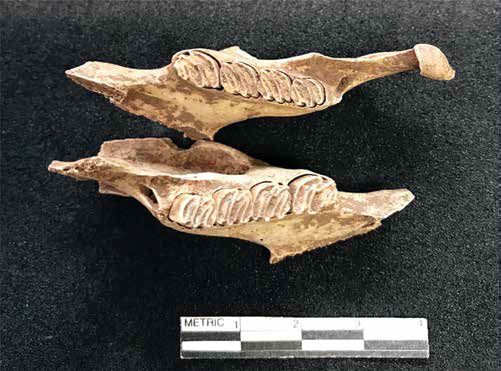
La fauna terrestre vertebrada está compuesta mayormente por la hutía Isolobodon portoricensis y por la iguana Cyclura cornuta. (Fotos 1 y 2).
El resto de la colección vertebrada lo compone la hicotea Trachemys stejegeri vicina y las aves. Esta última es el renglón más exiguo de toda la colección fáunica con solo nueve muestras repartidas en cinco especies.
De las cuatro especies de crustáceos identificados predominan dos especies de cangrejo, el cangrejo de mangle, Cardisoma guanhumi, seguido de la buruquena, Epilobocera sinuatifrons. La presencia de las otras dos especies, Callinectes spp., y Carpilius coralinus, es insignifi- cante.
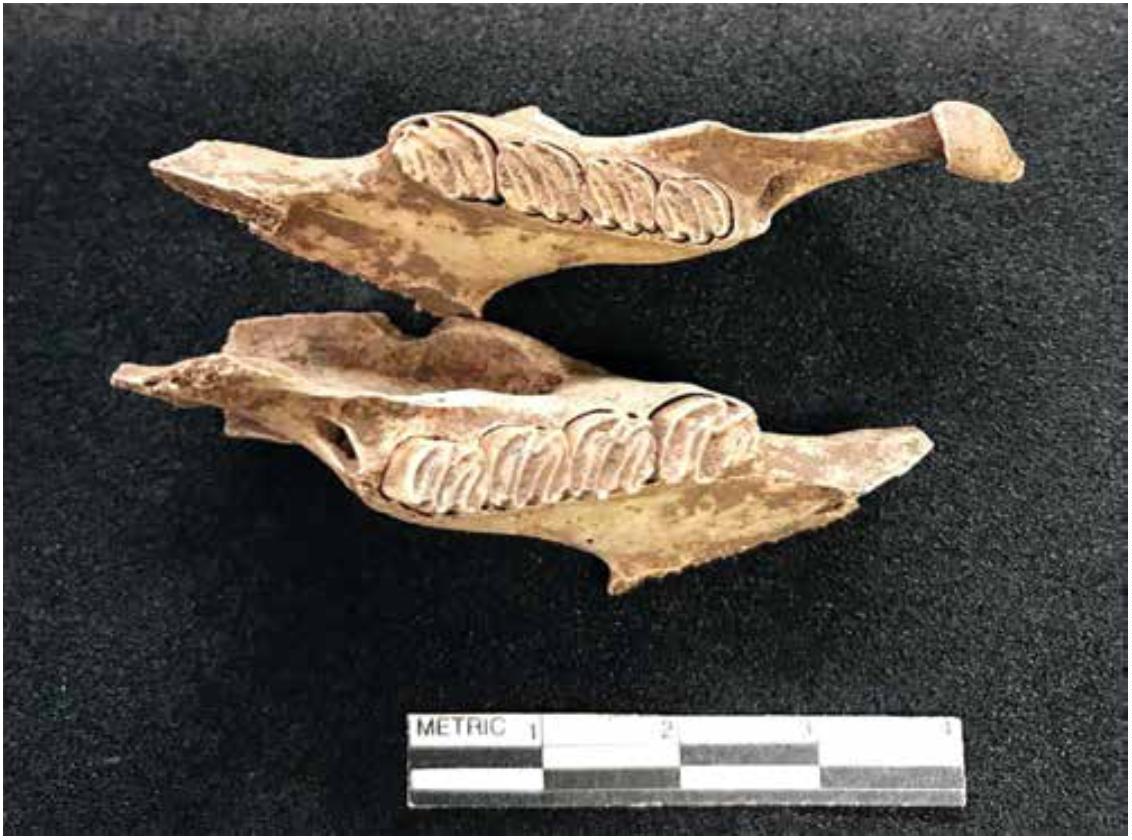
Foto 1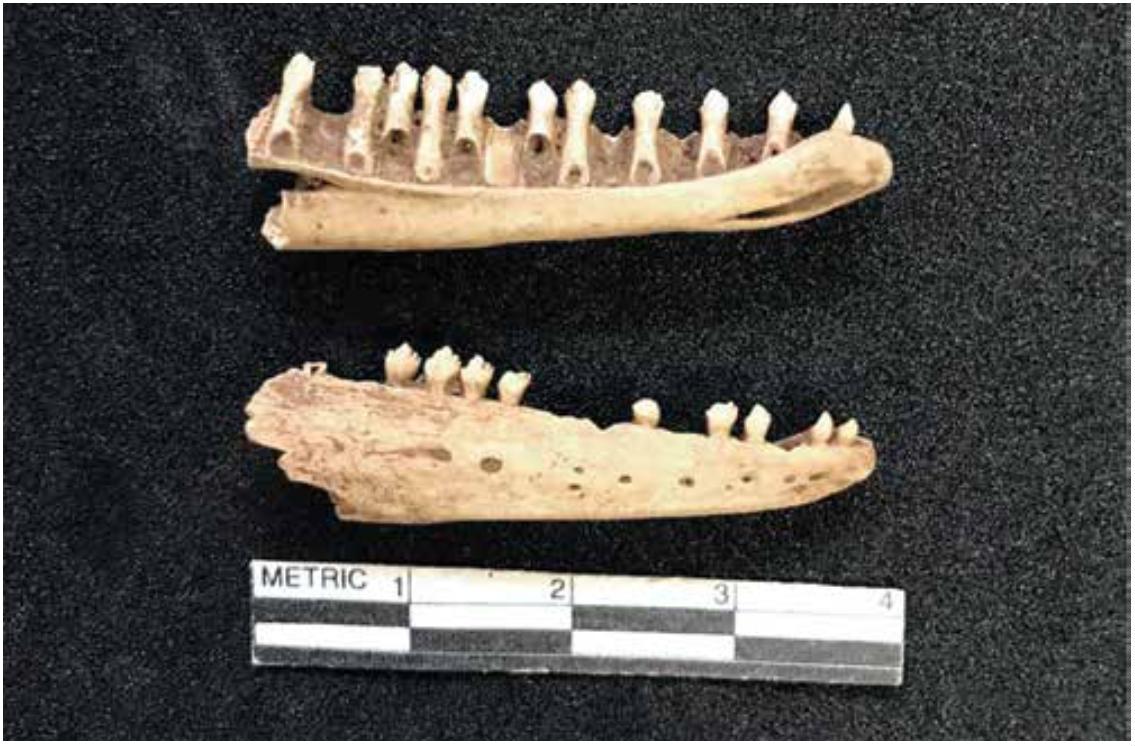
Foto 2
Entre las modificaciones óseas identificadas, encontramos cinco categorías. Las primeras dos abarcan los adornos y los remanentes del hueso del cual extrajeron instrumentos de trabajo o adornos ya que solo disponemos de esta evidencia. Las dos siguientes categorías se circunscriben al procesamiento de las partes anatómicas del animal para su consumo, ya sea mediante la exposición al fuego o al corte de la carne (Foto 3). La última categoría se refiere al estado final o tafonomía del resto óseo después de consumida la carne, que en este caso muestra marcas dentales (Foto 4).
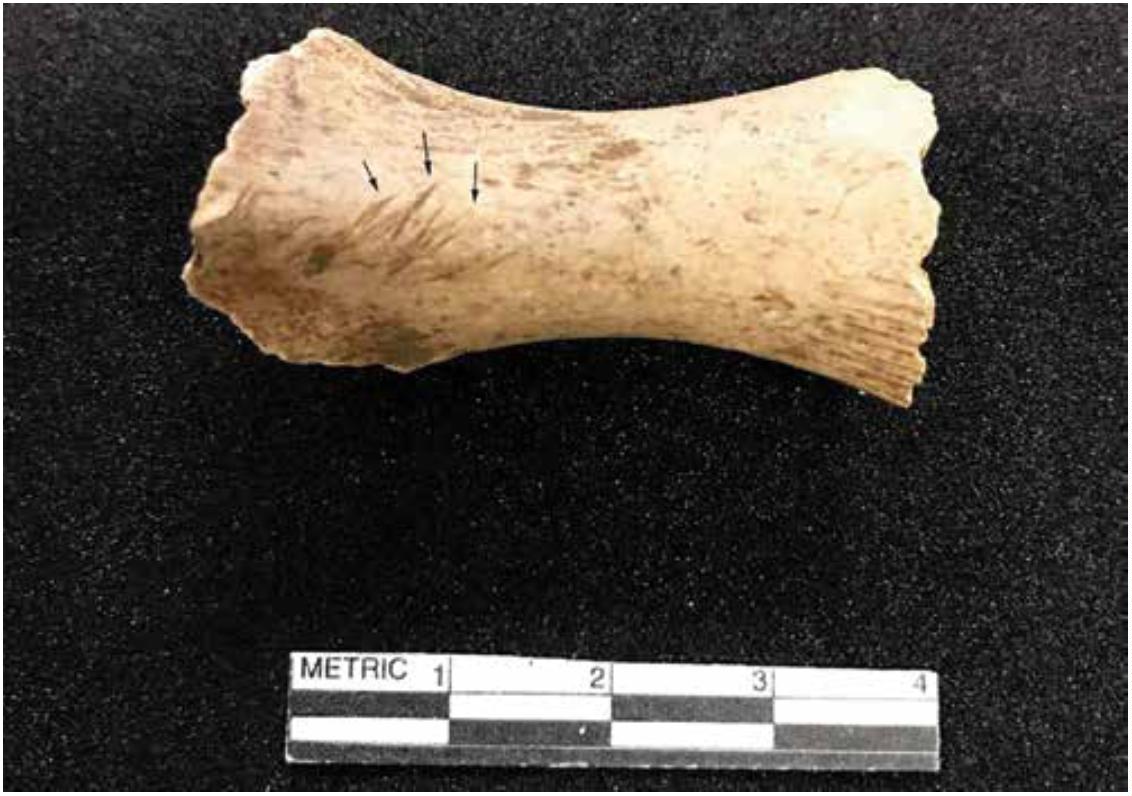
Foto 3
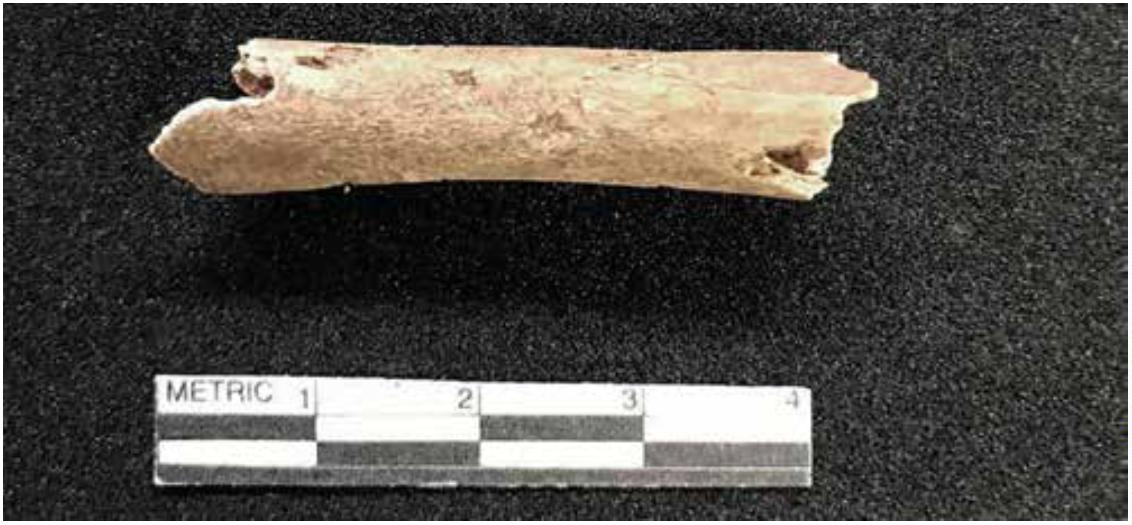
Foto 4
La siguiente sección presenta una breve descripción de la fauna identificada del sitio El Francés. Se desglosa la información según el medioambiente a que pertenece y luego se identifican las especies que lo habitan.
Hábitat terrestre
Mamíferos
Entre los mamíferos terrestres encontramos al perro doméstico Canis familiaris, especie presente en las tierras americanas desde tiempos prehispánicos. En las Antillas formaba parte de la colectividad del poblado indígena donde se distinguían dos tamaños, el pequeño y el mediano. Los conquistadores españoles informaron sobre su presencia en las Antillas, señalando que había dos tamaños. Que los pequeños eran falderos y muy apreciados por los indígenas (Las Casas, 1967). Esta práctica se conserva hoy en día en algunas comunidades amazónicas. Oviedo (1959) informa que los usaban para cazar las hutías.
Temprano en la década del 1920, se confirma los dos tipos de perro de Centro y Suramérica y luego en la Rep. Dominicana y Puerto Rico, basado en las características de tamaño, mediano y pequeño según lo reportan Allen (1920), Lawrence (1977), Wing (1991a) y Worthington (2008).
Estos perros no ladraban, según los cronistas que los llegaron a ver, sino que gruñían. La introducción de otras razas de perros del Viejo Mundo y su utilización como alimento y otras situaciones adversas a su desarrollo provocaron la extinción de este animal en las Antillas.
En Puerto Rico no se han descubierto restos de perro en los basureros arcaicos. Sin embargo, son comunes en el periodo agro-ceramista saladoide y huecoide donde se han encontrado enterramientos de perro en sus basureros. Aunque la mayoría de sus restos aparecen diseminados entre los desechos del basurero (Chanlatte,1984; Rodríguez, 1991).
La hutía, Isolobodon portoricensis, pertenece a la gran familia Capromydae de roedores del Nuevo Mundo y en la actualidad extinta en las islas de La Española y Puerto Rico (Foto 1). Esta especie es natural de La Española y fue introducida por los pobladores arcaicos de dicha isla hacia Puerto Rico (Narganes y Rivera, 2011, Woods, 1989). Este roedor era generalmente del tamaño de un conejo grande ubicaba sus madrigueras en las áreas boscosas cerca de las sabanas y de los sembradíos. Se cree que estos animales eran exclusivamente terrestres, no arbóreos y de hábitos nocturnos (Cooke y Crowley, 2018; Woods, 1989).
Esta especie de hutía fue utilizada como alimento por todos los grupos culturales de la isla de Puerto Rico (arcaicos, huecoides, saladoides, ostiones, santa elena, esperanza y capá). Sin embargo, su consumo fue más intenso entre los grupos pretaínos.
Aves
Aunque la presencia de aves en esta colección es mínima, pudimos identificar algunas especies entre ellas a la familia Ardeidae (garzas, yaboas y martinetes) y la paloma sabanera Patagioenas inornata. Los miembros de la primera se pueden encontrar en las lagunas saladas, mangles y ciénagas tanto de agua dulce como semisalobre. La segunda es más bien de las áreas boscosas y de las sabanas (Bond, 1985; Raffaele, 1989).
En la isla de Puerto Rico estas especies son preferidas por los grupos culturales agroceramistas tempranos saladoide y huecoide. De Sorcé se obtuvo un gran muestrario de restos óseos de aves de diferentes familias y géneros (Narganes, 2015 a y b). Es inusual encontrar una gran selección de especies de aves como alimento entre los grupos pretaínos y taínos de la isla de Puerto Rico.
Reptiles
La iguana, Cyclura cornuta, es una especie nativa de la isla La Española donde ocupaba gran parte del territorio (Foto 2). Vive en áreas rocosas, cuevas y farallones tierra adentro. Son animales de vida diurna y pueden nadar ágilmente. Se alimentan de plantas, frutas y pequeños invertebrados. Los juveniles tienen la capacidad de trepar a los árboles
de tronco oblicuo (Rivero, 1978; Schwartz y Henderson, 1991). Fue utilizado como alimento por los grupos agroceramistas saladoide y huecoide de Puerto Rico, aunque de manera moderada (Narganes, 1982, 2015 a y b).
Crustáceos
El cangrejo de tierra Cardisoma guanhumi, es un crustáceo comúnmente localizado en las zonas de mangles de la llanura costanera. Hace sus cuevas en el litoral húmedo arenoso cercano a los bosques de mangles. Es fácil capturarlos y su carne es muy apreciada (Chance y Hobbs, 1969). Esta especie es uno de los alimentos preferidos por las poblaciones agroceramistas tempranos suramericanos huecoides y saladoides en Puerto Rico, así lo reflejan las profusas cantidades consumidas y descartadas en sus basureros.
Hábitat de agua dulce
Aves
Las aves del género Anas spp., pertenecen a la gran familia Anatidae de patos. Son una familia de distribución mundial y en las Antillas Mayores las hay tanto residentes como migratorias. Estas aves mudan su plumaje en verano, lo que permite que sean cazadas con facilidad. La carne de estas aves es muy apreciada (Bond, 1980; Raffaele, 1989).
Reptiles
La hicotea o tortuga terrestre, Trachemys stejnegeri vicina, se encuentra en la isla de La Española y en Puerto Rico es la subespecie T. stejnegeri stejnegeri. Se distingue por ser un animal acuático, que le gusta vivir cerca de los cuerpos de agua dulce, tales como charcas, ríos, lagunas y lagos, aunque también es muy activa en tierra. Son de tamaño mediano y de buen sabor su carne (Rivero, 1978; Schwartz y Henderson, 1991).
Crustáceos
La buruquena, Epilobocera sinuatifrons, es un cangrejo de agua dulce de tamaño mediano a pequeño. Vive en la parte alta de los ríos de corrientes rápidas donde se esconden entre las piedras. También se les encuentra en las charcas y pueden trasladarse por tierra en algunos casos. Es muy apreciada como alimento (Chance y Hobbs, 1969). Las comunidades indígenas cercanas a grandes cuerpos de agua dulce generalmente tienden a consumir esta especie (Narganes, 1990, 1997, 1998, 2012).
Hábitat de playa
Aves
En el litoral costero o en los islotes adyacentes a tierra firme se pueden encontrar varias especies de aves. La boba prieta, Sula leucogaster, es mayormente un ave marina que anida en localidades rocosas cercanas al mar o en islotes rocosos y procuran su alimento en el mar. El pelícano pardo, Pelecanus occidentalis, es un ave marina que mayormente se encuentra en las costas en donde pueden obtener abundante alimento (Biaggi, 1979; Bond, 1980; Raffaele, 1989).
Reptiles
La mayoría de las tortugas marinas pertenecen a la familia Cheloniidae, de las cuales hay cuatro géneros en el Atlántico. La especie Chelonia mydas, comúnmente conocida como tortuga verde (peje blanco), es una de las tortugas más grandes que logra alcanzar sobre el metro de largo. Es una especie omnívora, aunque sus juveniles son más carnívoros. Prefieren las aguas bajas con abundante vegetación de donde consumen variedad de algas, raíces y hojas de mangle, además de las hierbas típicas de los bajos arenosos costeros. Es la única especie de tortuga marina que se asolea en la playa (Ernst y Barbour, 1989).
El desove en las playas es un acontecimiento nocturno preferiblemente lejos de las zonas alimentarias. Su época reproductiva se extiende aproximadamente desde mayo hasta agosto. Su carne es muy apreciada, así como sus huevos, circunstancia que ha causado que estén considerados en muchos lugares en peligro de extinción (Ernst y Barbour, 1989).
Otro género de tortuga atlántica es el carey, Eretmochelys imbricata imbricata. Es una de las tortugas marinas más pequeñas que puede alcanzar el metro de largo. Se encuentra generalmente en los arrecifes de coral y en las localidades rocosas. También frecuenta las aguas bajas y zonas de mangle, estuarios y lagunas de bajos fangosos. Pueden flotar entre la hierba de Sargassum, mar afuera, en las aguas profundas. Se reproduce en los meses de abril a noviembre en que desova en las playas, siendo los meses de junio y julio los de actividad más intensa. Es una especie mayormente omnívora, que busca alimentarse de invertebrados, esponjas, erizos y corales, aunque los juveniles parecen ser más bien herbívoros. Su carapacho es muy apreciado para la confección de diversos productos, mayormente prendas, carteras y adornos: por lo que está en peligro de extinción. Su carne y sus huevos son muy apreciados como alimento, aunque existen advertencias de que almacena toxinas provenientes de varios organismos venenosos. Esto se debe a que consumen algunos animales tóxicos, entre ellos las medusas y algunas especies de pescados (Ernst y Barbour, 1989).
La especie Caretta caretta, conocida popularmente como cabezón, puede recorrer grandes extensiones mar afuera. Se le suele encontrar en las bahías, lagunas, manglares y en los estuarios. La época reproductiva ocurre entre los meses de abril hasta julio, en que desovan en la playa que comparten con otras especies de tortugas marinas. Como las demás tortugas, tiene hábitos omnívoros y frecuenta los arrecifes de coral y rocosos. Como alimento es la menos cotizada por su carne dura y fibrosa (Ernst y Barbour, 1989).
Las tortugas marinas fueron cazadas por nuestros indígenas antillanos de dos maneras: la primera fue la más sencilla y consistía en voltearla en la playa después que terminara de desovar. La segunda manera es la más singular e ingeniosa, según lo detallan los cronistas españoles, Las Casas y Fernández de Oviedo. Fue en la costa sur de la isla de Cuba que Cristóbal Colón observó, por primera vez, la pesca con el reverso y los corrales para contenerlos. En estos corrales además de los reversos, mantenían las tortugas marinas y otros peces como las lizas.
Comenta Fernández de Oviedo que los indígenas antillanos, particularmente los de la isla de Jamaica y Cuba, tenían una manera peculiar de pescar los manatíes y las tortugas, utilizando el pez reverso o la rémora, de la que hay dos especies en las Antillas, Echeneis naucrates y Remora remora. Eran mantenidos estos reversos en corrales en el litoral marino donde eran conservados para su reproducción y crianza cuya finalidad eran las actividades de pesquería. Los amarraban con una cuerda y los soltaban al agua cuando veían una presa deseada tales como tortugas, sábalo o manatí. Este reverso se pegaba inmediatamente a la presa con tal fuerza que era difícil desprenderlo. La técnica indígena requería que lo fuera halando poco a poco hasta que la presa cansada se dejaba llevar hasta llegar cerca a la playa donde se volteaba si era tortuga o arponeado si era manatí. Luego despegaban con delicadeza el reverso de la presa y era llevado a su corral (Fernández de Oviedo, 1959). En el mundo se ha reportado esta misma manera de pescar solamente en las islas del estrecho de Torres al norte de Australia (Frazier, 2005).
Hábitat litoral – estuario
Mamíferos
El manatí, Trichechus manatus, es un animal dócil que habita el litoral costero de poca profundidad, mayormente en áreas del litoral costero cercana a los estuarios y la desembocadura de los ríos. Son herbívoros en su totalidad y se alimentan de yerbas marinas como la Thallasia y la Cymodoces, así como las que pueda arrastrar el río, como lo es la yerba de enea, Typha. Es una carne muy estimada y de excelente sabor (Vivaldi, 1988). Según los cronistas españoles los cazaban con redes y con arpón, aunque Oviedo afirma, sin ser testigo presencial, que lo pescaban con una de las especies de rémora.
Peces
El guanábano, Diodon hystrix, habita las aguas bajas costeras. Se pesca con trampas y redes (Randall, 1983).
Crustáceos
El género Callinectes spp., conocido como jaiba o cocolía, son cangrejos que habitan las aguas bajas del litoral costero y las zonas de estuario (Chance y Hobbs, 1969).
Hábitat de bancos y arrecifes
Peces
El mero Epinephelus striatus, prefiere las áreas del arrecife de coral. Se pesca con trampas, arpón y redes.
La pluma, Calamus calamus, busca las áreas de arrecifes de coral, aunque los juveniles pueden encontrarse en los bajos arenosos. Se pesca usando trampas.
El capitán de piedras Halichoeres radiatus, se encuentra en los arre- cifes de coral y rocosos. Se pesca con trampa y cordel.
Entre la gran familia Scaridae se encuentra el género Scarus spp., de loros, donde la especie Scarus guacamaia, habita los arrecifes coralinos. Otro género y especie de esta familia lo es Sparisoma viride, que habita los arrecifes de coral. Estas dos especies se pescan con trampas y arpón.
El peje puerco Balistes vetula, es un pez de piel áspera y dura que prefiere vivir en el fondo de los arrecifes de coral. Se pesca con trampas y cordel (Randall, 1983: Vivaldi, 1988).
Hábitat pelágico
Mamíferos
La infra orden Cetácea está formada por las ballenas, los delfines y las marsopas. En el Atlántico norte existen una docena de especies de ballenas entre las que figuran los mamíferos más grandes del mundo y otros tan pequeños que apenas llegan a 3 metros de largo. Le siguen los delfines y las marsopas que pueden llegar a medir unos cuatro metros de largo, de las cuales hay casi una veintena de especies.
Estos animales son gregarios y viven en las aguas profundas de los océanos mientras que, algunas especies de delfines y de marsopas, pueden habitar los estuarios y ríos. Las especies más pequeñas pueden acercarse al litoral costero en busca de alimento (Nowak, 1999).
Peces
Los atunes del género Euthynnus spp., pertenecen a la familia Scombridae. La especie Euthynnus pelamis vive mayormente en aguas profundas, aunque en ocasiones se les puede ver en aguas de poca profundidad cerca de pequeños islotes mar afuera. Son cotizadas estas especies por su carne de gran calidad. Se pescan con arpón y cordel (Randall, 1983).
Hábitat múltiple
Peces
Forman parte de la familia Carcharhinidae de tiburones, una variedad de géneros y especies que viven en diversidad de hábitats, que incluye el litoral costero, los arrecifes coralinos y bancos arenosos y mar afuera.
Las diferentes especies del género de agujones, Tylosurus spp., se encuentran mayormente en la superficie del agua, así como en las aguas del litoral costero y mar afuera.
El robalo, Centropumus undecimalis, suele encontrarse en diversos ambientes tales como el litoral costero, los estuarios, lagunas salobres y en ocasiones pueden entrar a los grandes ríos y otros cuerpos de agua dulce. Se captura utilizando el cordel, arpón o las trampas para los juveniles.
Integran la familia Serranidae de meros, las dos especies, Epinephelus adscencionis y Epinephelus guttatus. Frecuentan mayormente los arrecifes de coral y las áreas rocosas de poca profundidad. Conforma la misma familia el género Mycteroperca spp., y la especie Mycteroperca tigris, que también se encuentra en los arrecifes de coral y las aguas bajas del litoral costero. Se pescan todas estas especies con trampas y cordel (Randall, 1983).
Los jureles, Caranx hippos y Caranx latus, se encuentran generalmente en las aguas bajas del litoral costero, en los estuarios de los ríos y pueden penetrar río arriba. También se les suele encontrar en aguas profundas. Se pesca con trampas, cordel y arpón.
Entre las cinco especies de pargos identificados del género Lutjanus spp., se encuentran los siguientes: Lutjanus analis, Lutjanus apodus, Lutjanus griseus, Lutjanus mahogoni y Lutjanus synagris. Estos peces son carnívoros y pueden encontrarse en variedad de zonas; las aguas bajas arenosas con algas del litoral costero, los estuarios, los arrecifes de coral y las zonas de mangle del litoral. Se pescan con trampas, arpones y redes.
Las especies de ronco, Anisotremus surinamensis y Haemulon album, forman parte de la familia Haemulidae. Pueden pescarlos en diversos ambientes ecológicos preferentemente en los arrecifes coralinos seguidos de las zonas de bajos rocosos y bajos del litoral costero. Su captura es mediante trampa y redes.
La familia Labridae de capitanes, se compone de varias especies entre las que incluye a Bodianus rufus y Lachnolaimus maximus. Suelen encontrarse en los arrecifes de coral y en el litoral costero de aguas cla- ras y bajos arenosos. Suelen ser pescados con trampas, arpón y cordel.
La barracuda, Sphyraena barracuda, pasa su tiempo entre los arrecifes de coral y mar afuera en busca de alimento. Los juveniles de esta especie se les puede encontrar en las aguas de bajos arenosos y fondos de algas del litoral costero. Se les pesca con arpón o cordel.
En la familia Scombridae se encuentra el género de especies de sierras, Scomberomorus spp., que mayormente se encuentra en los arrecifes mar adentro y en las aguas bajas del litoral costero. Se captura mediante cordel o arpón (Randall, 1983).
Crustáceos
El cangrejo de mar, Carpilius coralinus, prefiere las aguas bajas en los arrecifes coralinos y las aguas bajas de hierba del litoral costero. Se pesca con trampas (Kaplan, 1988).
DISCUSIÓN
Las reflexiones presentadas en esta primera sección son tomadas considerando los resultados obtenidos de la lista general fáunica del sitio El Francés, que incluye todos los niveles estratigráficos. Algunos de los cortes y unidades estratigráficas son muy pequeñas en cuantía para hacer una determinación concluyente, por lo que este método nos puede aportar un panorama más amplio en cuanto a la utilización y selección de la fauna por parte de los pobladores del lugar. Finalizaremos con un análisis del material fáunico de los cortes y unidades estratigráficas con asignación cultural para determinar las diferencias observadas entre cada cultura.
La presencia del perro en los yacimientos arqueológicos en las Antillas está muy bien documentada y confirma los estudios anteriores relacionados a los dos tipos de tamaño como hemos mencionado anteriormente.
El estudio realizado por la Dra. Wing (1991a) quien analizó 22 especímenes de perro del sitio arqueológico de Sorcé, en Vieques, Puerto Rico, pertenecientes a las culturas huecoide y saladoide, además de coincidir con los resultados anteriores sobre el tamaño de estos animales, obtuvo varios datos significativos. En su mayoría, los restos encontrados en este sitio corresponden a partes anatómicas dispersas en el basurero, sin embargo, algunos, los menos, fueron enterrados diligentemente (Narganes 2015a). Grouar et al (2013), hace mención de esta práctica en las Antillas Menores.
Wing descubrió varias condiciones particulares en este muestrario, tales como, la falta de piezas dentales como resultado de una anomalía de origen genético característico de estos animales y la ausencia del cuarto premolar en el 30% de la muestra analizada. Esta característica también fue advertida con anterioridad por Lawrence (1977) en Rep. Dominicana, en Ecuador por Zeder (1987) y en algunas islas de las Antillas Menores (Grouar et. al, 2013).
Desafortunadamente, los restos óseos de perro en este muestrario son escasos y solo corresponden a tres fragmentos de la diáfisis de los huesos largos hallados en un corte en particular (corte 12 UE 1). Parecen corresponder a un perro de tamaño mediano a pequeño. Sin embargo, no hay más datos que podamos aportar.
En cuanto a la única evidencia obtenida de cetáceo en esta muestra del sitio arqueológico de El Francés, podemos deducir que probablemente fue un hallazgo fortuito, el cual los pobladores de la aldea aprovecharon. La vértebra torácica mide unos 10 cm de diámetro y por su tamaño pensamos que quizás pudiera tratarse de alguna especie de delfín.
Los delfines tienden a acercarse al litoral terrestre en busca de alimento y logran entran en contacto con mayor facilidad con las poblaciones de pescadores. También cabe la posibilidad de que mueran mar adentro y sus cuerpos son arrastrados hacia las playas por las fuertes corrientes o porque van a morir cerca a la costa y terminan varados en la playa. El sitio arqueológico se encuentra justamente en el litoral costero (este de Samaná) fuertemente golpeado por las corrientes y oleajes marinos del Atlántico que han erosionando gravemente el sitio arqueológico a través del tiempo. Es precisamente el canal de la Mona el paso que toman algunos de estos grandes mamíferos y otras pequeñas especies que buscan refugio en el Caribe durante el invierno.
Como hallazgo fortuito y más allá del consumo de la carne disponible que pudiera estar en buen estado, sin lugar a dudas, tuvieron interés en algunos de los huesos de la osamenta tales como esta vértebra, con la cual fabricarían variedad de objetos de trabajo. Sin embargo, esto no se concretó, ya que la vértebra está intacta, el hecho de que fuera llevada al poblado significa que hubo otro motivo adicional al del consumo de su carne. De otra manera hubiera sido descartada en la playa donde fue inicialmente hallada.
La muestra de restos de manatí, Trichechus manatus, en esta colección ósea, se reduce exclusivamente a la parte anatómica de la costilla. Seis de estos fragmentos de costillas mostraron huellas de trabajo del cual, confeccionaron instrumentos de trabajo o algún tipo de adorno. Disponemos de cuatro ejemplares de la costilla de donde extrajeron la porción deseada mediante desgaste y corte. (Fotos 5-8).
Es poco común encontrar en los yacimientos indígenas abundantes evidencias óseas del manatí. Sin embargo, es frecuente encontrar fragmentos de la costilla, algunos elaborados como instrumentos de trabajo y otros en adornos. Esto puede deberse a que probablemente este animal debió ser procesado cerca al área de captura. En el área de descuartizamiento, realizarían todas las actividades, tales como seccionar la carne para el consumo y elegir los huesos que les fueran útiles para sus necesidades y así evitar transportar una carga tan pesada hasta la aldea. Un manatí adulto puede llegar a medir unos tres metros de largo y pesar hasta 1,500 kilogramos. Sus huesos son extremadamente densos y pesados. Tiene sentido esta táctica con menos gasto de energía en el transporte y mayor eficiencia en lo que realmente les interesaba obtener. En la Foto 7, se aprecian varias marcas de una navaja de pedernal como evidencia de la extracción de la carne.
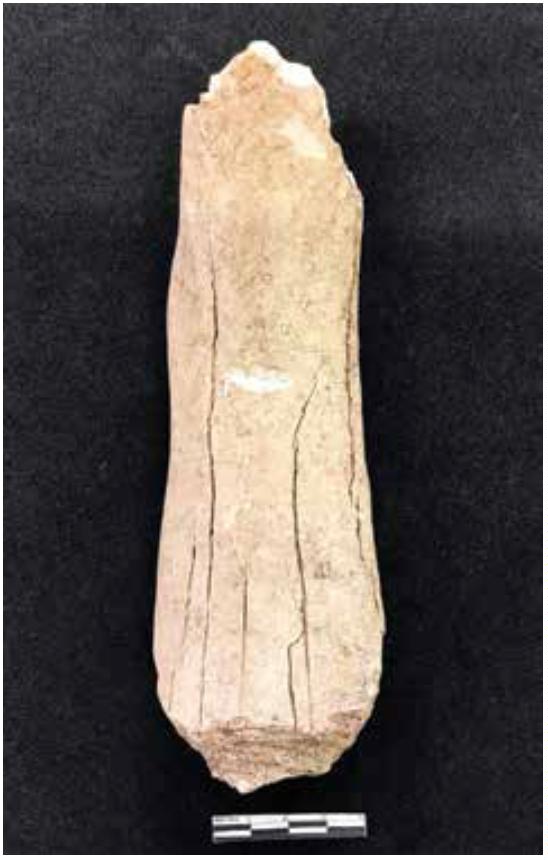
Foto 5
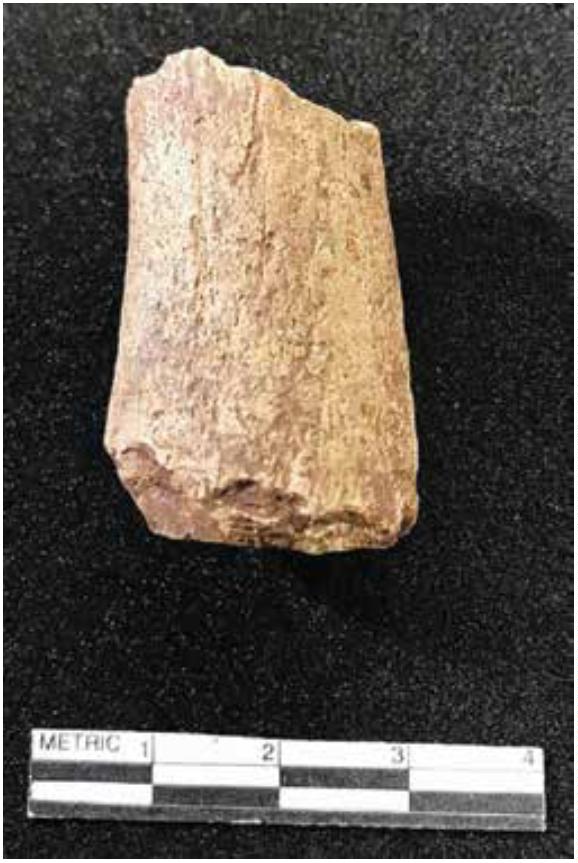
Foto 6
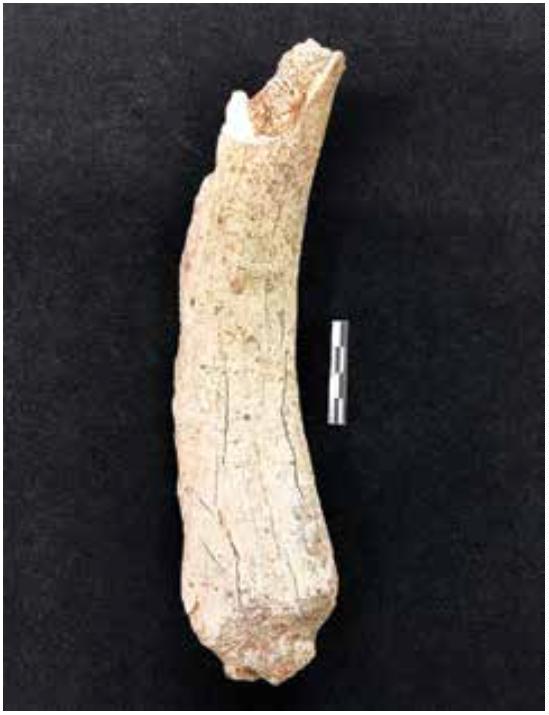
Foto 7
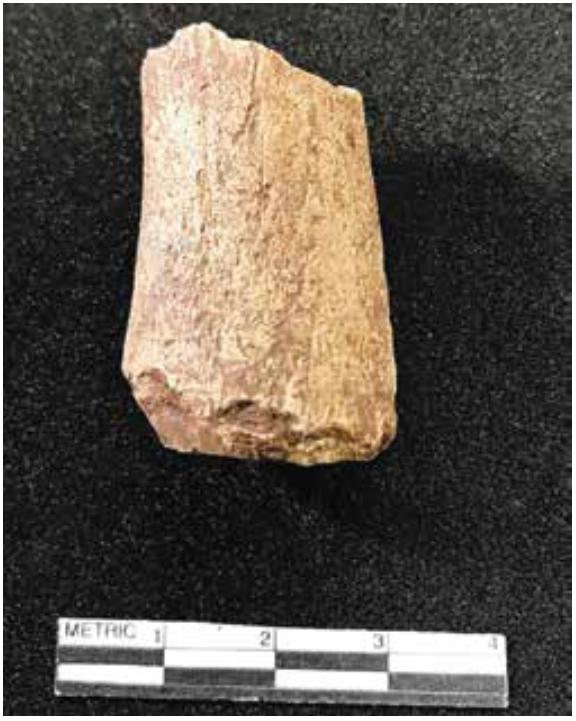
Foto 8
En Puerto Rico, la especie de roedor más utilizado como alimento por todas las culturas indígenas de la isla lo fue la hutía, Isolobodon portoricensis. En el 2011 comprobamos que esta especie de hutía estaba presente entre los restos óseos fáunicos arcaicos del sitio de Angostura en Barceloneta y utilizada como alimento por estas poblaciones (Narganes y Rivera, 2011). Los hallazgos de restos óseos fáunicos en los sitios arcaicos en Puerto Rico son escasos, probablemente debido a factores relacionados con las condiciones del terreno que no son favorables a su conservación. En general, los basureros arcaicos están compuestos de gruesas capas de moluscos, mayormente de bivalvos y en menor proporción de gasterópodos, que aparte de la antigüedad de estos sitios, no constituyen un lugar propicio para la conservación de los huesos (Narganes, 2011).
Entre los pobladores agro ceramistas suramericanos, fueron los saladoides los que prefirieron esta especie de hutía a la rata espinosa Heteropsomys insulans, nativa de la isla y favorecida por los Huecoides. Es de notar que ambas culturas utilizaron esta especie, aunque en diferentes proporciones (Narganes, 1982, 2015a y b). El consumo de estos roedores fue moderado entre ambos grupos culturales y nunca formó parte integral de su dieta.
Prácticamente fue la única especie consumida entre las poblaciones tardías pretaínas y taínas de la isla de Puerto Rico (Narganes, 1999, 2017). Es de gran importancia destacar este comportamiento ya que fueron las poblaciones culturales arcaicas de la isla La Española quienes domesticaron este roedor y lo introdujeron en Puerto Rico, donde se desarrolló y fue utilizado por las poblaciones arcaicas de dicha isla. Posteriormente, la predilección de este roedor por los grupos pretaínos y taínos de Puerto Rico nos permite sugerir que este roedor fue su primera selección como alimento por sobre la otra especie existente nativa, la rata espinosa. Podemos entonces suponer, que la preferencia por este animal, manifestada por los grupos pretaínos y taínos, nos indica que estos grupos culturales proceden de una línea arcaica y no de los grupos agroceramistas suramericanos, saladoides y huecoides.
De igual manera, observamos un comportamiento similar en el consumo de moluscos marinos y en particular, en la selección de algunas especies de bivalvos, donde las culturas arcaicas, pretaínas y taínas utilizaban una selección de especies particulares compartida entre ellos. Mientras que los grupos agro-ceramistas suramericanos utilizan otras especies de moluscos bivalvos como fuente alimenticia (Narganes, 2011).
En la colección ósea analizada de El Francés, notamos que esta es la única especie de roedor presente. Su consumo fue modesto en comparación con otras especies terrestres identificadas del lugar. Aunque se encuentra en todos los cortes excavados, no así en todas las unidades estratigráficas. Podemos especular que quizás el área geográfica costera donde se estableció el poblado indígena de El Francés fue muy agreste para el buen desarrollo y la forma de vida natural de este roedor. La insignificante muestra de juveniles también nos indica que no fueron criados en corrales, sino que eran cazados probablemente en sus hábitats naturales.
Es insignificante el renglón de las aves en esta colección. No obstante, las especies identificadas son las que típicamente consumieron las poblaciones agroceramistas saladoides y huecoides. Las especies Sula leucogaster (boba) y Pelecanus occidentalis fueron cazadas por las sociedades agro ceramistas tempranas suramericanas por sus extremidades posteriores (huesos largos, generalmente fémur) con las cuales elaboraban cuentas, adornos y canutillos que servían como inhaladores de substancias secas para los rituales de la cohoba (Narganes, 2015 a y b; 2017). Lo mismo aplica a las especies que forman parte de la familia Ardeidae (garzas, yaboas y martinetes).
Las palomas son las especies de aves más utilizadas como alimento por los agroceramistas suramericanos saladoides y huecoides. También están presentes, aunque en menor proporción, entre los restos fáunicos de otros grupos culturales posteriores, como lo son los pretaínos y taínos en Puerto Rico. En esta colección su presencia es mínima, sin embargo, el hecho de que figuran entre los restos óseos analizados, confirma la predilección por este género.
Los patos, Anas spp., también fueron consumidas por los agros ceramistas suramericanos, pero en menor proporción que las palomas. Estas aves no son frecuentes entre los restos fáunicos de los grupos culturales pretaínos y taínos.
La presencia de las tortugas terrestres o hicoteas, Trachemys stejnegeri vicina, es moderada entre los restos fáunicos del sitio El Francés. En Puerto Rico este animal fue utilizado como alimento por los grupos tempranos agro ceramistas suramericanos de manera moderada mientras estuvieran disponibles y abundantes en su localidad. En la isla de Puerto Rico, fue moderada su utilización por los grupos posteriores pretaínos y taínos.
Aparte de su valor alimenticio, los pobladores de El Francés, rehicieron un objeto de trabajo del caparazón de esta hicotea que generalmente era confeccionado del carapacho dorsal de las tortugas marinas (Fotos 9 – 10). Lo extraordinario es la elaboración de este instrumento de trabajo del carapacho de esta especie y específicamente de la parte ventral y precisamente del escudo o costal lateral abdominal. Dos ejemplares, aunque fragmentados, tienen buen tamaño y corresponden a los cortes C- 11, UE – 17 y al C -12, UE – 16. Un tercer fragmento más pequeño y rudimentario apareció en el corte C – 11, UE – 8 (Foto 11).
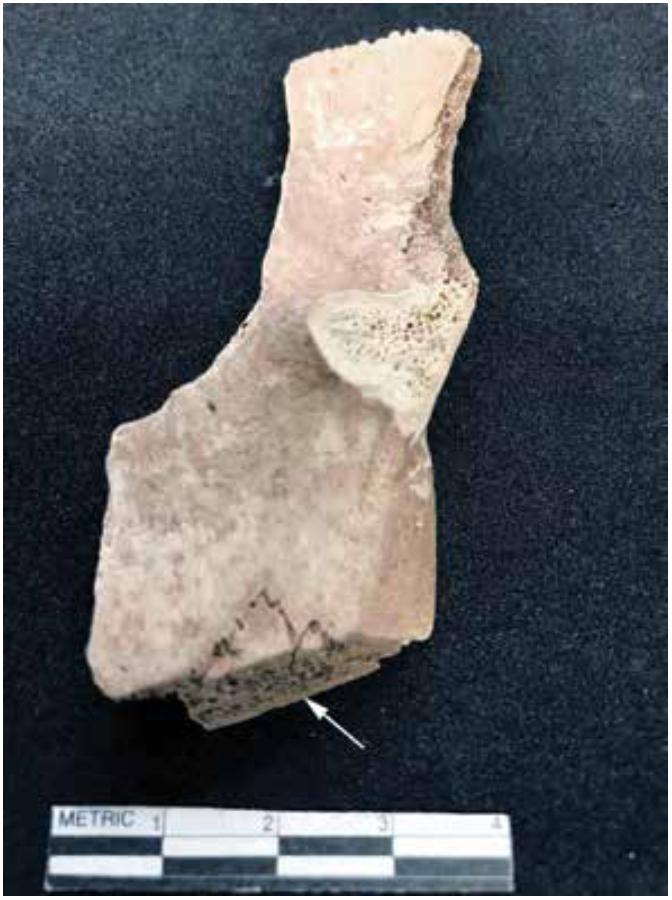
Foto 9
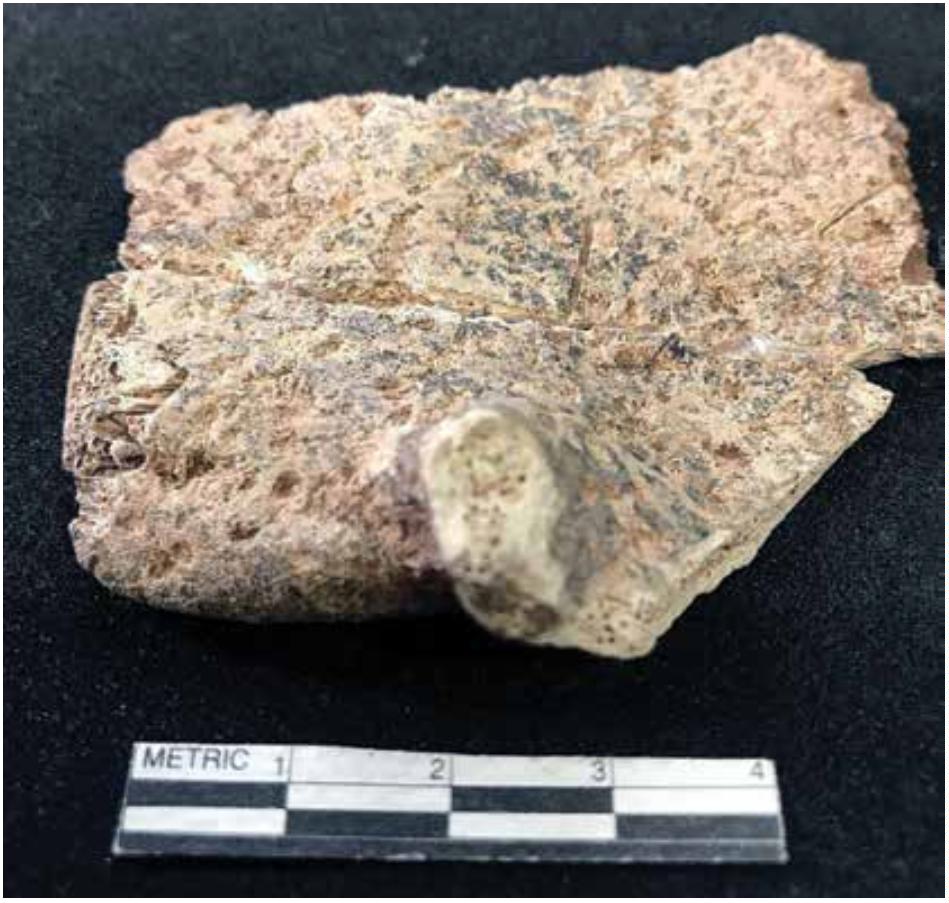
Foto 10
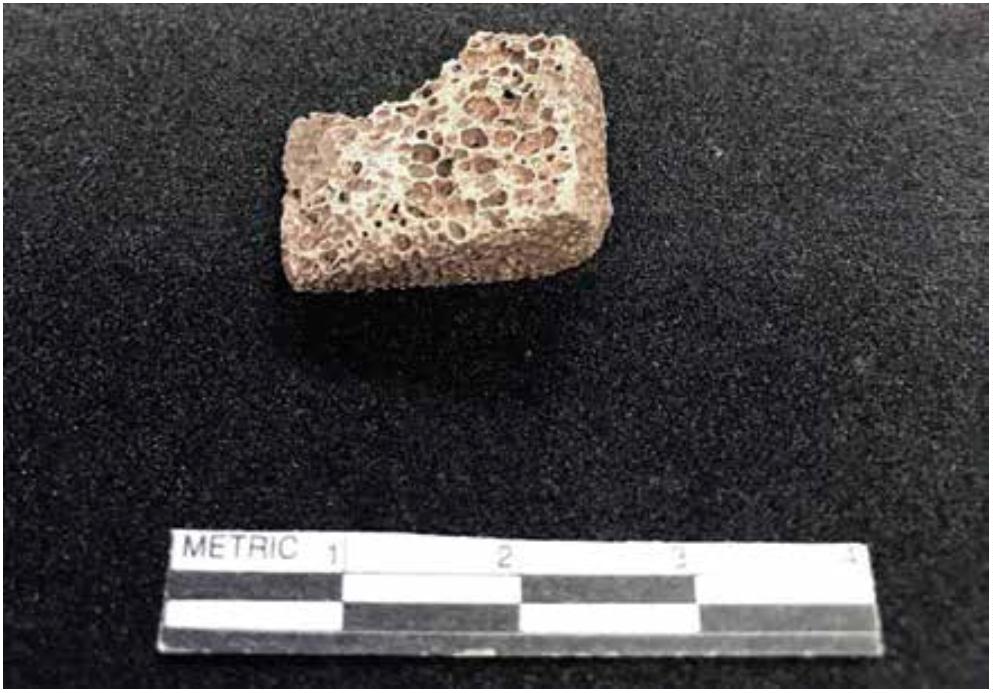
Foto 11
Estos objetos se distinguen por poseer un filo o desgaste en uno de sus bordes que culmina en bisel, presumiblemente causado por el pulimento con otro objeto. Que tengamos conocimiento, estos tres objetos son únicos, por representar la primera vez que se ha identificado este artefacto, específicamente para esta especie terrestre.
En El Francés, las tortugas marinas Cheloniidae, conforman el grupo alimenticio más grande después de los pescados marinos. Es uno de los alimentos favoritos de los grupos saladoides en las Antillas Menores y Puerto Rico. Sin embargo, entre los huecoides no fue un alimento elegido sino ignorado por completo. Era a tal grado el gran valor y gusto por este animal, que los grupos saladoides, para demostrar su estimación, confeccionaron una variedad de vasijas con formas de tortugas marinas y las menos en tortugas terrestres. Estas vasijas efigies de quelonios eran muy populares en todas las épocas saladoides, desde la temprana hasta la tardía.
Estos animales fueron llevados intactos a la aldea donde encontramos en sus basureros todos sus elementos anatómicos poscraneales. Allí fueron procesados para obtener su carne y para seleccionar los elementos elegidos del caparazón con la finalidad de crear un característico y singular instrumento de trabajo del que ya hemos hecho mención anteriormente (Fotos 12 -16). Seleccionaban del caparazón dorsal los escudos (costales) laterales 3 y 4, que son de forma rectangular y los más gruesos. Generalmente, uno de los lados de este objeto muestra un filo o bisel creado por desgaste con otro objeto.
Fueron descritos inicialmente en la península de Florida (EEUU) y en las islas de Curazao y luego en Barbados (Frazier, 2005; Van Heekeren, 1963; Wing, 1965, 1991b). Estos objetos son típicos de la cultura saladoide en Puerto Rico (Narganes, 2015; 2017). El uso de estos artefactos es notable entre los grupos saladoides tempranos, aunque va decayendo su uso entre los grupos saladoides tardíos de la isla.
Un excelente ejemplar lo encontramos en el corte C -13, UE – 7, y otro en el corte C -11 UE – 17. Los demás objetos están fragmentados y son de menor tamaño y pertenecen a los cortes C – 11, UE 0; C – 11, UE 1; C -11 UE -8. El ejemplar del corte C – 11, UE- 8 fue elaborado del caparazón de la especie Eretmochelys imbricata o carey (Foto 16, izq.). Varios de estos artefactos provienen de especímenes juveniles de quelonios. Un hueso poscraneal de esta animal muestra huellas del uso de una navaja de sílex o pedernal para extraer la carne del hueso (Foto 3).
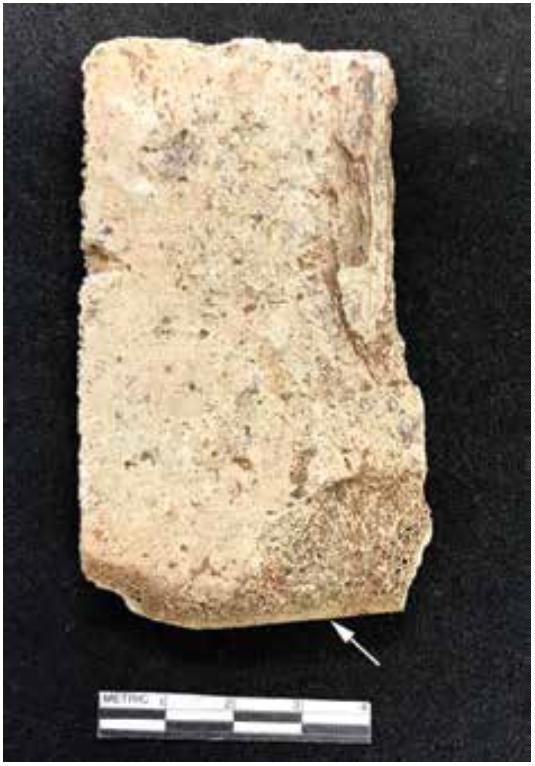
Foto 12
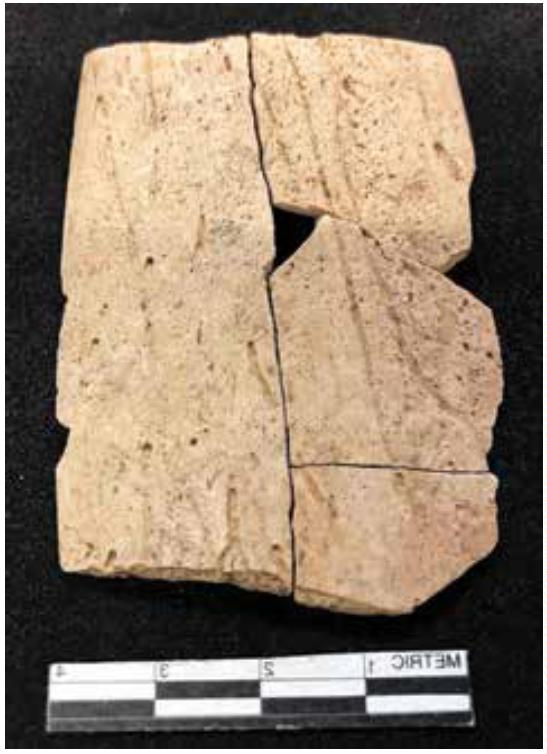
Foto 13
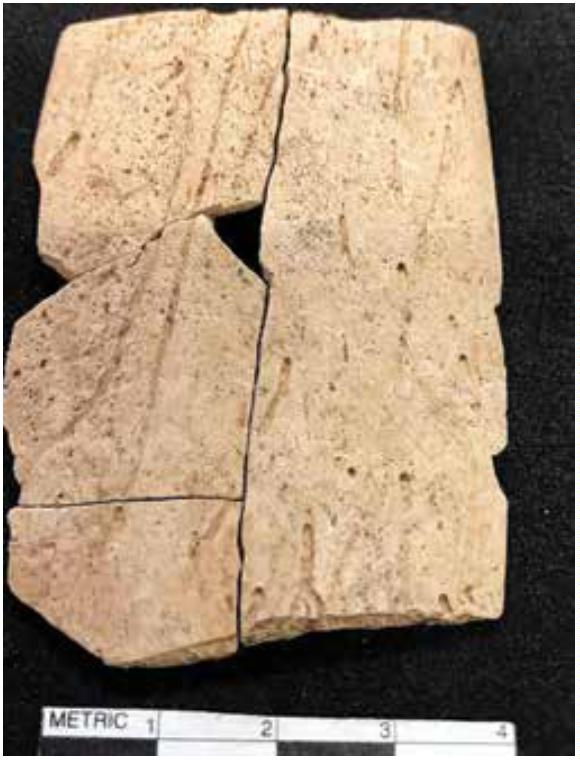
Foto 14
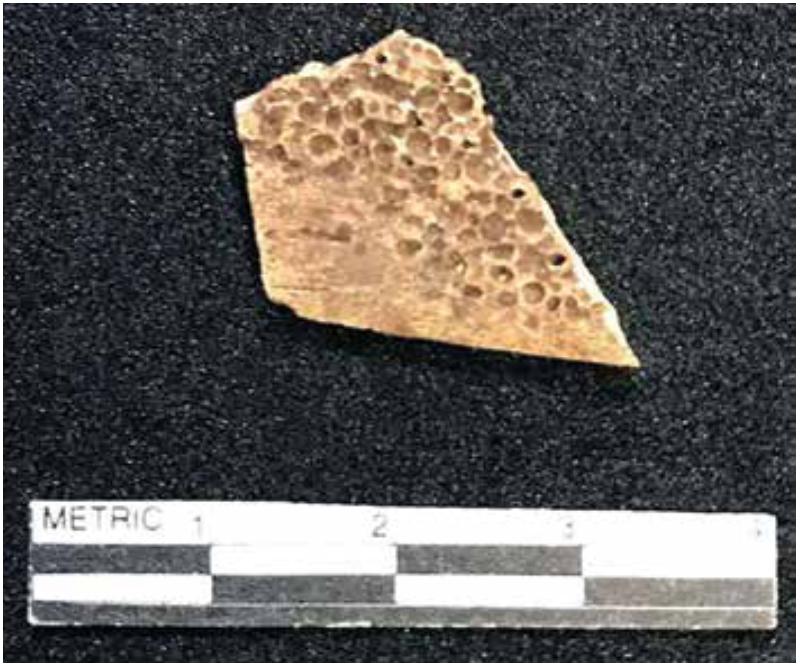
Foto 15
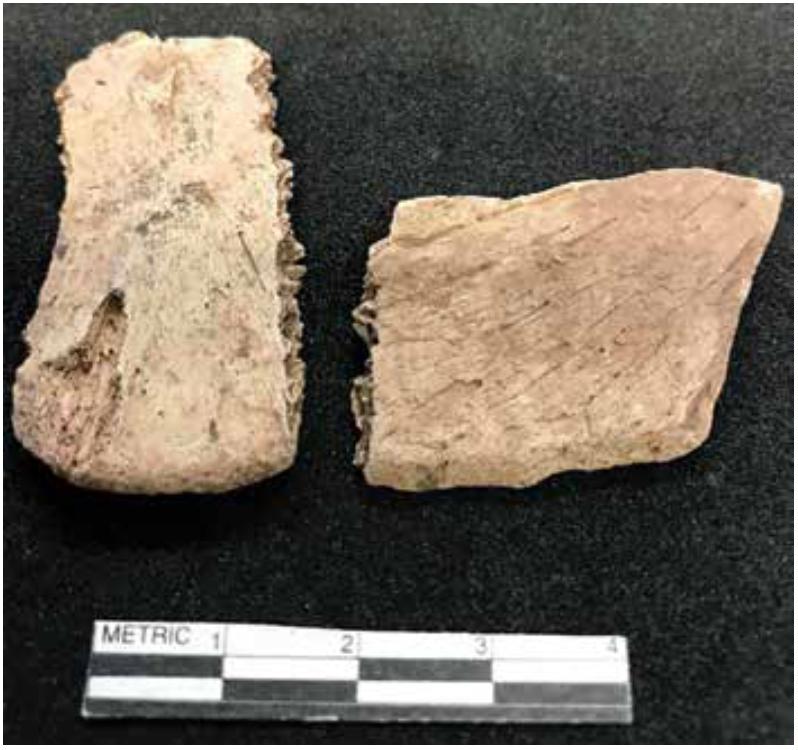
Foto 16
La utilización de estos animales por las poblaciones pretaínas y taínas fue moderada a escasa. Por lo cual, estimamos que representa un indicador cultural, no tan solo por el volumen de consumo entre los grupos saladoides, sino por la exclusiva presencia de estos particulares instrumentos de trabajo entre su ajuar cultural.
La iguana, Cyclura cornuta, representa el tercer grupo de mayor consumo como alimento en la muestra fáunica de El Francés. Es sorprendente la gran cantidad de estos animales en este yacimiento. En Puerto Rico, su presencia está confirmada entre los grupos agro ceramistas suramericanos saladoide y huecoide de Sorcé, Vieques. El volumen de consumo era moderado entre estas poblaciones tempranas. Del estudio se desprende que el animal fue capturado y transportado en su totalidad a la aldea donde fue procesado para su consumo, ya que todos sus elementos anatómicos están presentes en el basurero de El Francés, de igual manera sucedió en Sorcé. Sin embargo, el alto consumo de este animal en El Francés nos sugiere que la presencia de esta especie era numerosa en los alrededores de la aldea. Según los cronistas españoles su carne era apetecible y de buen sabor. Al parecer los pobladores de El Francés lo estimaban mucho como alimento ya sea por su accesibilidad como por su sabor. Según los datos actuales, en Puerto Rico, la utilización de esta especie entre los grupos pretaínos y taínos es casi nula en muchos de los sitios arqueológicos.
Los pescados son el grupo más numeroso y de mayor representación en esta colección fáunica. Se identificaron 14 familias y 25 especies, correspondientes al 41% de toda la muestra analizada. El hábitat más utilizado fue el múltiple, donde los pescadores recurrieron a las diversas zonas naturales donde podían encontrar las especies preferidas. Le sigue en preferencia: el hábitat de bancos y arrecifes; del litoral – estuario y finalmente el pelágico.
Se destacan las siguientes especies en orden de preferencia o consumo: Balistes vetula, Caranx hippos, Centropomus undecimalis y Sparisoma viride. Seguidos por Diodon hystrix, Scarus guacamaia, Epinephelus guttatus y Halichoeres radiatus. De estas especies, hay cuatro que corresponden al hábitat de bajos y arrecifes, tres al hábitat múltiple y uno al hábitat de litoral – estuarino. Podemos precisar que el hábitat de mayor utilización por los pobladores de El Francés fue los bajos arenosos y los arrecifes, ya que el hábitat múltiple se refiere a la pesca de una especie en varios ambientes naturales de pesca.
El resto de las especies de pescados presentes contienen pocas muestras de cada taxón, lo que nos sugiere que, aunque fueron consumidas, no eran sus preferidas. Sin embargo, muchas pertenecen a las mismas familias de sus pescados preferidos. Evidentemente trataban de buscar especies dentro de estas familias con las cuales estaban ya familiarizados.
Cabe destacar la presencia del género de atunes, Euthynnus spp., y la especie E. pelamis, que también forma parte de la dieta de los grupos tempranos saladoides de Puerto Rico. Aunque son animales de aguas profundas este género puede acercarse a la costa siguiendo los cardúmenes de peces pequeños. Estas sociedades tempranas hicieron un esfuerzo por capturar estas especies que posiblemente eran muy estimadas.
El espécimen identificado en esta colección del género Scomberomous spp., pertenece a la gran familia Scombridae de atunes y sierras y debió ser pescado fortuitamente, junto a los atunes, ya que solo contamos con un ejemplar. No fue una especie consumida por los saladoides de Puerto Rico ni por otros grupos culturales indígenas de la isla.
Identificamos dos adornos elaborados de la vértebra de tiburón (Foto 17). Estas cuentas corresponden a un animal juvenil a juzgar por su tamaño. Pertenecen al Corte C -11 UE 0 y 1. Estos objetos también forman parte de las especies fáunicas utilizadas por los grupos saladoides y huecoides.
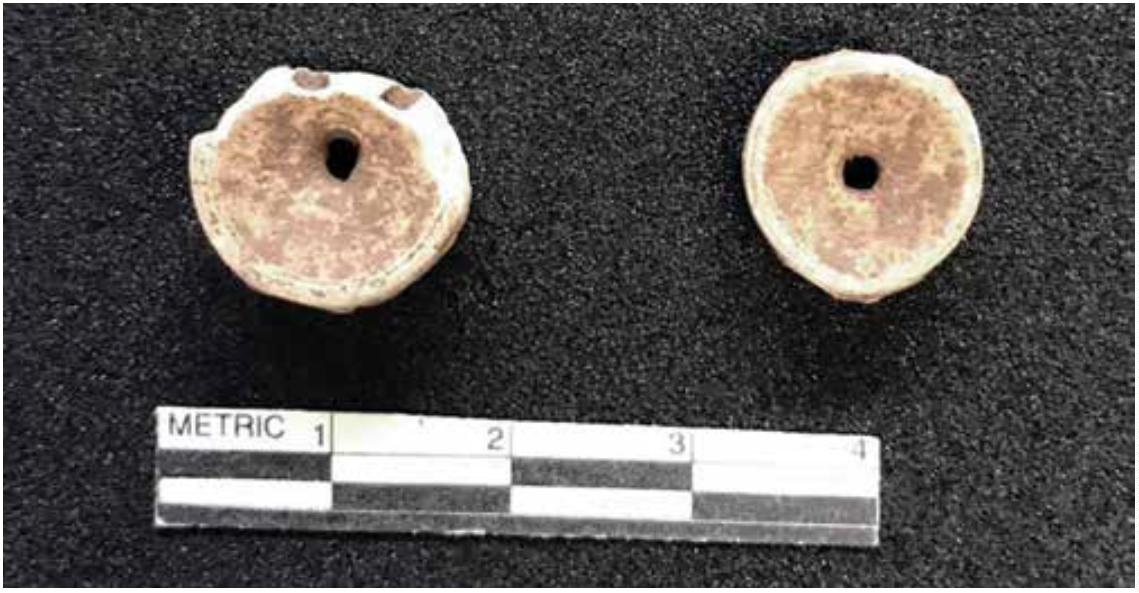
Foto 17
Análisis cultural
Efectuamos un análisis de los cortes y niveles estratigráficos identi- ficados culturalmente para poder profundizar un poco más en el análisis fáunico, en este caso con énfasis en las preferencias alimentarias culturales. Aunque el material fáunico para este análisis en particular es menor en términos numéricos (2458 muestras NISP) a la totalidad de la colección ósea (3803 muestras NISP), sin embargo, es posible obtener un resultado satisfactorio al integrar el estudio de los restos de moluscos terrestres y marinos obtenidos del lugar y suministrado por el Arq. Adolfo José López.
Culturas ciguoide y protochicoide: El material fáunico del Nivel 1 es el más pequeño de los tres muestrarios estudiados para este fin, conteniendo 330 muestras NISP, muy poco para un resultado confiable. No obstante, nos revela que los pobladores de El Francés dependían mayormente de la pesca, en particular del atún Euthynnus spp., y del róbalo Centropomus undecimalis. Le sigue en importancia el crustáceo Cardisoma guanhumi, las tortugas marinas Cheloniidae, la iguana Cyclura y finalmente las aves y la hutía Isolobodon portoricensis. Esta selección de especies tiene características saladoides tardías en el patrón de consumo de las especies empleadas, aunque el gran consumo de la iguana no es típico de esta cultura. Para optimizar el análisis recurrimos a las especies de moluscos identificados para este nivel, que constituye una parte esencial de la dieta de las poblaciones antillanas antiguas (Narganes, 2011). Inmediatamente nos indica que las especies utilizadas corresponden a las culturas anteriores o posteriores a la saladoide.
El uso intensivo de dos moluscos de tierra, Pleurodonte excellens y Polydontes spp., señala que hay un grupo étnico de tradición cultural no saladoide (arcaico, huecoide o pretaíno). El uso del cangrejo Cardisoma guanhumi así como el gasterópodo Cittarium pica representan un indicador de las culturas tempranas arcaica, huecoide y saladoide en Puerto Rico. La presencia de un número sustancial de las especies Arca spp., señala grupos arcaicos (Narganes, 2011). Las especies bivalvas Tellina spp., Trachicardium muricatum y Chione spp., junto a los gasterópodos Strombus costatus y Murex brevifrons, son mayormente consumidas por las sociedades pretaínas aunque también fueron utilizadas por grupos arcaicos, pero en menor proporción.
La presencia de Codakia orbicularis, Strombus spp., y Cypraecassis testiculus son especies utilizadas por todas las culturas ya que era la materia prima usada para confeccionar algunos instrumentos de trabajo. Del Strombus spp., obtenían diversos tipos de raspadores y punzones necesarios para su vida cotidiana. Las bivalvas C. orbicularis y la Lucina pectinata (ausente en esta colección) fueron utilizados para dos funciones particulares como descamadores y para descascarar la yuca (Oviedo, 1959). Del Cypraecassis testiculus obtenían material para adornos además de un utensilio llamado en Puerto Rico “cucharas” por su forma rectangular curva que servía para trabajar la cerámica como alisadores y pulidores a falta de rocas lisas halladas en los ríos (llamados chinos de río en Puerto Rico).
Culturas cuevas y ciguoide: El material fáunico del Nivel 2 es el más abundante de los tres grupos estudiados, con un total de 1552 muestras NISP, lo que garantiza un resultado más confiable. Los pescados son el renglón mayoritario de toda la muestra, con más de la mitad de los restos fáunicos óseos. Del muestrario se destacan dos especies, los atunes y entre ellos Euthynnus pelamis, el peje puerco Balistes vetula, seguidos del robalo C. undecimalis y el jurel Caranx hippos. Es interesante notar el gran empleo del pescado B. vetula en este nivel, opinamos que se puede deber a una utilización adicional a la alimentaria. Su piel es áspera y pudo servir para rallar o lijar materiales como la madera o el hueso, así como los indígenas utilizaban la piel del tiburón para los mismos fines. La iguana Cyclura y las tortugas marinas Cheloniidae le siguen en preferencia cuantitativa. Finalmente, completan la dieta la presencia de la tortuga terrestre Trachemys s. vicina y de la hutía I. portoricensis, aunque estas representan un consumo esporádico o quizás ritual debido a su poca presencia en la colección. Los crustáceos fueron utilizados muy modestamente si lo comparamos cuantitativamente con las demás especies de este nivel. El cangrejo C. guanhumi es la especie más destacada de este grupo. Entre la fauna ósea podemos decir que la abundante utilización de los atunes y las tortugas marinas son típicos de la cultura saladoide. Sin embargo, las otras especies reflejan otras sociedades culturales posteriores. El uso intensivo de las iguanas tampoco corresponde con los saladoide.
La especie de molusco de mayor utilización en este nivel corresponde al caracol de tierra Pleurodonte excellens, por abrumadora mayoría numérica seguido de Polydontes spp. Le sigue el gasterópodo C. pica y el Strombus spp. El gasterópodo S. costatus y las bivalvas Tellina spp., y Arca spp., reflejan una dieta correspondiente a las culturas pretaínas y arcaica.
Cultura saladoide cedrosan: En el Nivel 3, el material fáunico óseo, aunque con mayor representación numérica (592 muestras NISP) al primer nivel estratigráfico, también es muy poco para un resultado confiable. En primer lugar, tenemos a las tortugas marinas Cheloniidae como el recurso de mayor utilización seguido de los pescados en conjunto. Entre los pescados se destacan el jurel C. hippos en primer lugar, seguido del robalo C. undecimalis y finalmente los atunes. El cangrejo C. guanhumi es la especie dominante cuantitativamente y curiosamente no hay una utilización intensiva del animal. Es interesante la presencia significativa de la iguana C. cornuta y en menor grado de la hutía I. portoricensis en la muestra. En cuanto a las preferencias entre los moluscos encontramos que el C. pica es la especie preferida seguida de los moluscos terrestres P. excellens y Polydontes spp., y finaliza con las especies Nerita peloronta, L. gigas y Strombus spp.
Podemos concluir que la selección de fauna del Nivel 3 corresponde a la cultura saladoide, justificado por la abrumadora cantidad de restos de tortuga marina, una especie preferida por ellos que, junto al consumo de los atunes, el cangrejo C. guanhumi, los gasterópodos C. pica y Neritina peloronta revela indudablemente la presencia saladoide. Sin embargo, el alto consumo de la iguana, del robalo y el jurel, así como un significativo aprovechamiento de la hutía I. portoricensis confirma que no corresponde totalmente a la cultura saladoide temprana.
La dieta o los alimentos consumidos por una población o etnia no cambian rápidamente, es un comportamiento muy arraigado en las sociedades humanas, así como en el reino animal, y cambia lentamente (Narganes, 2015 a). Tuvimos la gran fortuna de analizar y describir el menú o la dieta de los pobladores saladoide de Sorcé, Vieques, a través de un periodo de 1,600 años de asentamiento del lugar. Esta experiencia nos permitió identificar no tan solo las especies utilizadas por esta población saladoide a través del tiempo sino también determinar la frecuencia de algunas especies sobre otras, su utilización periódica tomando como base el consumo mensual, las especies aprovechadas para fines rituales y las especies predilectas (Narganes 2015 b).
Generalmente las alteraciones ocurren por factores externos (cataclismos geológicos, climáticos y otros de orden social generados por imposiciones políticos-sociales) que impiden que la sociedad continúe consumiendo sus productos predilectos por un tiempo hasta que alcancen regresar a sus hábitos alimentarios tradicionales.
En este caso, estos cambios no fueron impuestos por factores externos, más bien por necesidades sociales entre los grupos saladoides antillanos. Desde su salida de la región baja del Orinoco, los saladoides tuvieron relaciones con los grupos arcaicos del norte venezolano y luego en la isla de Trinidad (Boomert, 2000). Presumimos que esta relación continuó a lo largo de la migración saladoide a través de las Antillas orientales hasta llegar a la isla de La Española. Los grupos saladoides fueron acompañados en sus migraciones para fundar aldeas hijas, por otros grupos étnicos no saladoides, como lo fueron los huecoides (Chanlatte y Narganes, 2005, Narganes, 2015a). En otros casos por los arcaicos, quienes, a través del tiempo y por ser mayoría poblacional en las Antillas, ejercieron su presencia al relacionarse lentamente al entorno saladoide y eventualmente influyen en los abastecimientos de comestibles mediante la selección de alimentos fáunicos de su predilección (Narganes, 2011, 2015 a y b). Este hecho explicaría el leve cambio observado en la dieta saladoide de El Francés, que refleja otros gustos y predilecciones en el consumo de origen fáunico vertebrado e invertebrado en particular de los moluscos marinos.
Los grupos saladoides que arribaron al sitio El Francés fueron acompañados por otros grupos étnicos arcaicos posiblemente desde Puerto Rico. Ya establecidos en El Francés continuó la colaboración entre ambas poblaciones incluidas las locales, hasta que finalmente en el Nivel 2 se observa claramente un notable cambio donde la interrelación mutua entre ambas sociedades culturales se ve reflejada en sus hábitos alimenticios o dieta.
Sin lugar a dudas, el análisis de los restos malacológicos ha sido fundamental en determinar confiablemente la afiliación cultural de cada nivel estratigráfico del sitio El Francés.
Conclusiones
El sitio de El Francés es mayormente un yacimiento de orientación costera, como se desprende de los resultados del estudio de los materiales fáunicos vertebrados e invertebrados crustáceos expuestos en la Tabla 3. Las tortugas marinas Cheloniidae, el carey E. imbricata y los peces marinos fueron la fuente alimenticia primaria de origen vertebrado consumido por los pobladores del sitio. Entre las especies predominantes de peces en esta colección encontramos: el peje puerco B. vetula, el robalo C. undecimalis, el jurel C. hippos, el loro S. viride y el cotorro S. guacamaia. Esta selección de especies de El Francés, aunque característica de las poblaciones saladoides de Puerto Rico, mayormente se asocia a los grupos tardíos de esta cultura, según lo reflejan las proporciones obtenidas en este estudio.
La lista general de pescados del sitio El Francés tiene mucha similitud con estudios fáunicos provenientes de otros sitios saladoides en Puerto Rico. Aunque los sitios saladoides tempranos se caracterizan por el volumen y por una mayor variedad de familias y de especies, particularmente de pescados y de aves, podemos concluir que las especies representadas en este estudio corresponden a las especies de mayor consumo de este grupo cultural. Un muestrario mayor podría suministrar un resultado más robusto, no obstante, los resultados generales de este estudio no cambiarían significativamente (Narganes, 2015a).
En Dorado 42 (Narganes, 2013), pudimos observar esta tendencia, aunque con algunas diferencias. Permaneció la variedad de especies típica de la cultura saladoide temprana, particularmente la preferencia por el mero y el pargo (familias preferidas por los grupos tempranos saladoides). Sin embargo, ya se comienza a apreciar otras tendencias tales como la disminución en la variedad de las aves consumidas y el aumento en la utilización del sábalo (Megalops atlanticus) y las especies del loro, S. viride y de los cotorros, Scarus spp. Podemos concluir con bastante seguridad, que estos grupos saladoides establecidos en El Francés y en Dorado, pertenecen a grupos culturales tardíos saladoides. La evidencia fáunica apunta hacia cambios preferentes a ciertas especies que van tomando mayor importancia en este período con respecto a los periodos anteriores.
El sitio Dorado 42 no aportó entre sus restos fáunicos, especímenes del género de atunes Euthynnus spp., típicos del periodo temprano de la cultura saladoide. Presumimos que los factores que incidieron en este resultado son mayormente de índole geográfico. En primer lugar, que las aguas del Atlántico que azotan fuertemente las costas del norte de la isla de Puerto Rico gran parte del año, son poco favorables para la pesca de estos animales de mar profundo. Que las zonas de pesca de estas especies se encuentran hacia el canal de la Mona y el pasaje de Vieques. El esfuerzo realizado en la obtención de esta especie resultaría poco eficiente para los habitantes indígenas de Dorado. Aunque la localización de su aldea no era la adecuada para este tipo de pesca, nos inclinamos a pensar que la dieta de sus habitantes ya estaba en transición por lo que sustituir este recurso por otro más accesible era una alternativa factible.
Los recursos fáunicos terrestres de importancia de El Francés es- tán compuestos casi exclusivamente por tres especies de animales; la iguana, C. cornuta, la hutía, I. portoricensis, y entre los invertebrados, el cangrejo C. guanhumi. Por último, seleccionaron dos especies del hábitat de agua dulce, la tortuga terrestre T. stejnegeri vicina y la buruquena E. sinuatifrons, para complementar su dieta de origen animal.
Con la excepción de la iguana y de la buruquena, las otras tres especies terrestres y de agua dulce ya mencionadas, fueron utilizadas por las poblaciones saladoides como un recurso alimenticio complementario a los recursos de origen marino, como lo son los pescados y las tortugas marinas, que fueron el gran sustento de estas poblaciones. La notable presencia de la buruquena en Dorado 42, pudo deberse a la cercanía del poblado a ríos de flujo continuo. El fácil acceso de este recurso facilitó el gran consumo de esta especie por parte de los aldeanos.
El sitio El Francés puede considerarse singular por la considerable presencia de la iguana entre los restos fáunicos de la colección. La utilización de esta especie, por parte de los grupos saladoides en Puerto Rico, particularmente en Sorcé, fue moderado a través del tiempo. Aunque en Dorado 42, su presencia fue nula, especulamos que las condiciones naturales circundantes al lugar no eran favorables para su desarrollo. Los habitantes de Dorado se adaptaron a sus circunstancias de la misma manera que lo hicieron los pobladores de El Francés.
La enigmática selección de la localización de la aldea de El Francés, por parte de sus pobladores saladoides es digno de mayor estudio, si lo comparamos con las áreas al sur de la bahía de Samaná con más disponibilidad de tierras de cultivo, una zona kárstica con buen drenaje hidrológico, lagunas, manantiales y buenos ríos.
La selección de ubicación de la aldea en sitios adyacentes al mar generalmente corresponde a sitios saladoides tardíos tales como Dorado 42 en Dorado, Playa Jayuya en Fajardo y Vacía Talega en Loiza, Puerto Rico (Narganes, 2018). Este último sitio está localizado en la costa norte de Puerto Rico, cercano (al otro lado del rio Loíza) del yacimiento Hacienda Grande. Es un promontorio alto que se proyecta al mar Atlántico donde se estableció una población tardía saladoide. En Playa Jayuya, también se estableció un grupo saladoide tardío en la parte alta contigua al mar. El embate de las olas en estos sitios es potente y no es característico de las aldeas tempranas saladoides de Puerto Rico que se establecen tierra a dentro.
En definitiva, los rasgos fundamentales de la dieta típica saladoide están presenten en El Francés en el Nivel 3 aunque ya con leves cambios en los porcientos de algunas especies. No obstante, los cambios observados en los porcientos de consumo de las especies utilizadas, en particular de los moluscos seleccionados por los pobladores de El Francés del Nivel 2, reflejan una transición de la dieta característica saladoide.
Indudablemente los pobladores arcaicos y los acompañantes arcaicos del sitio El Francés participaron en la selección del establecimiento del poblado saladoide de El Francés. Los restos fáunicos apoyan esta conclusión. Este estudio demuestra la importancia de tomar en cuenta todos los criterios culturales, en particular la fauna vertebrada y malacológica, cuando intentamos identificar una población cultural a través del tiempo.
Bibliografía
Allen, Glover M. (1920). Dogs of the American Aborigines. Bulletin Mus. Zool. Harvard 63: 429-517. EE. UU.
Biaggi, Virgilio. (1970). Las aves de Puerto Rico. Editorial Universitaria. Universidad de Puerto Rico.
Bond, James. (1985). Birds of the West Indies. A Field Guide to the birds of the Caribbean and the Bahamas. Fourth Ed. Houghton Mifflin Com. Boston.
Boomert, Arie. (2000). Trinidad, Tobago and the Lower Orinoco Interaction Sphere. An archaeological/ethnohistorical study. Cairi publications, Alkmaar, The Netherlands.
Casas, Bartolomé de las. (1967). Apologética Historia Sumaria. Instituto de Investigaciones Históricas Universidad Autónoma Nacional de México.
Chance, F. Z. y H. H. Hobbs. (1969). The Freshwater and Terrestrial Deca- pod Crustaceans of the West Indies with special Reference to Dominica. Bulletin 292. Smithonian Institution Press. Washington.
Chanlatte Baik, Luis A. (1984). Arqueología de Vieques. Catálogo Centro Investigaciones Arqueológicas, Universidad de Puerto Rico. Río Piedras.
Chanlatte Baik, Luis A., e Y. Narganes. (2005). Cultura La Hueca. Museo de Historia, Antropología y Arte. Universidad de Puerto Rico, Río Piedras.
Cooke, Siobhán y B. Crowley. (2018). Deciphering the isotopic niches of now-extinct Hispaniolan rodents. Journal of Vertebrate Paleontology. DOI: 10.1080/02724634.2018.1510414. 1-16.
Ernst, Carl H. y Roger W. Barbour. (1989). Turtles of the World. Smithsonian Institution Press. Washington, D. C.
Fernández de Oviedo, Gonzalo. (1959). Historia General y Natural de las Indias. Vol. I y II. Biblioteca de Autores Españoles. Madrid.
Frazier, J. (2005). Marine turtles – the ultimate tool kit: a review of worked bones of marine turtles. En From Hooves to Horns, from Mollusk to Mam- moth. Manufacture and Use of Bone Artefacts from Prehistoric Times to the Present. Ed. H. Luik, A. Choyke, C. Batey y L. Lougas. Actas 4 ICAZ Worked Bone Research Group. Tallinn.
Grouar, Sandrine, S. Perdikari y K. Debu. (2013). Dog Burials associated with Human Burials in the West Indies during the early pre-Columbian Ceramic Age (500 BC-600AD). Anthropozoologica 48 (2); 447-465.
Kaplan, Eugene H. (1988). Southeastern and Caribbean Seashores. Peterson Field Guides. Houghton Mifflin Company. Boston.
Lawrence, Barbara. (1977). Dogs from the Dominican Republic. Cuadernos del Cendia. Centro Dominicano de Investigaciones Antropológicas. Vol. 263 #8. Santo Domingo. Rep. Dominicana.
Narganes Storde, Y. M. (1982). Vertebrate Faunal Remains from Sorcé, Vieques, Puerto Rico. Tesis MA. Universidad de Georgia, Athens. EEUU.
___________. (1990). Análisis de los restos faunísticos arqueológicos del sitio de Caracoles en Ponce, Puerto Rico. Manuscrito. Proyecto arqueológico Dir. Daniel Molina Feal.
___________. (1997). Análisis de los restos fáunicos de Maruca, Ponce. PR. Segunda Parte. Manuscrito. Proyecto arqueológico Dir. Miguel Rodríguez López.
___________. (1998). Análisis de los restos fáunicos del sitio Galateo, Toa Alta, Puerto Rico. Manuscrito. Proyecto arqueológico Dir. Ethel Schlafer.
___________. (1999). Informe fáunico del sitio arqueológico Cagüitas, Cagüas, Puerto Rico. Manuscrito. Proyecto Dir. Carlos Pérez Merced.
___________. (2011). Los moluscos un recurso alimenticio a través del tiempo e indicador cultural. Actas, XXIV Congreso Internacional de Arqueología del Caribe. Martinica. Pág. 249-252.
___________. (2012). Informe fáunico del sitio arqueológico Doraro-42, Dorado, Puerto Rico. Manuscrito. Proyecto arqueológico Dir. Hernán Ortiz Montañés.
___________. (2013). La fauna de un sitio costero de la isla de Puerto Rico. Dorado 42, Puerto Rico. Actas XXV Congreso Internacional de Arqueo- logía del Caribe. Puerto Rico. Pág. 323-335.
___________. (2015a). Sorcé historia de una aldea saladoide de pescadores. Tesis PH.D. Centro de Estudios Avanzados de PR y el Caribe. San Juan. Puerto Rico.
___________. (2015b). El Menú Saladoide de Sorcé. Actas XXVI Congreso Internacional de Arqueológica del Caribe. San Martin. Pág. 90-108.
___________. (2017). Objetos elaborados en hueso de la cultura saladoide de Sorcé, Vieques, Puerto Rico. Actas XXVII Congreso Internacional de Arqueología del Caribe. Santa Cruz. Pág. 220-234.
___________. (2018). Informe fáunico del sitio Playa Jayuya, Fajardo. Ma- nuscrito. Proyecto arqueológico Dir. Carlos Pérez para el Fideicomiso de Conservación de las Cabezas de San Juan, Fajardo.
Narganes Storde, Y. e Isabel Rivera. (2011). La fauna del sitio de Angostura, Barceloneta, Puerto Rico. Actas, XXIV Congreso Internacional de Arqueología del Caribe. Martinica. Pág. 296-299.
Nowak, Ronald M. (1999). Walker’s Mammals of the World. Vol. 1 y 2. John Hopkins University Press.
Randall, John E. (1983). Caribbean Reef Fishes. Segunda Edición. T.H.F. Publications. Inc. NJ. EEUU.
Raffaele, Herbert A. (1989). A Guide to the Birds of Puerto Rico and the Virgin Islands. Princeton University Press.
Rivero, Juan A. (1978). Los Anfibios y Reptiles de Puerto Rico. Editorial Universidad de Puerto Rico.
Rodríguez López, Miguel. (1991). Arqueología de Punta Candelero, Puerto Rico. Actas XIII Congreso Arqueología Internacional del Caribe. Curacao.
Schwartz, A. y R. W. Henderson. (1991). Amphibians and Reptiles of the West Indies. Descriptions, Distributions, and Natural History. University of Florida Press. Gainesville.
Van Heekeren, H. R. (1963). Studies on the Archeology of the Netherlands Antilles: III. Prehistoric Research on the Islands of Curacao, Aruba and Bonaire in 1960. Nieuwe West-Indische Gids. 43 ste Jaarg (1963-64) Pages 1-24.
Vivaldi, José Luis. (1988). Compendio Enciclopédico de los Recursos Natu- rales de Puerto Rico. Ed. Librotex, Inc. San Juan, Puerto Rico.
Wing, Elizabeth S. (1965). Animal bones associated with two Indian sites on Marco Island, Florida. Florida Anthropologist, 18:1, 21-28.
___________. (1991a). Dog Remains from the Sorcé site on Vieques Island, Puerto Rico. En J. R. Purdue, W. E. Klippel y B. W. Styles, eds. Beamers, Bobwhites and Bluepoints: Tribute to the Career of Paul Parmalee. Sprin- gfield: Illinois State Museum Scientific Papers 23: 379-386.
___________. (1991b). “Economy and Subsistence – Faunal Remains”. En, Prehistoric Barbados, por Peter Drewett. London Institute of Archaeology. University College. Londres.
Wing, E. y Antoinette B. Brown. (1979). Paleonutrition. Method and Theory in Prehistoric Foodways. Academic Press.
Woods, Charles A. (1989). The Biogeography of West Indian Rodents. En, Biogeography of the West Indies Past, Present and Future. Ed. Charles Woods. Sandhill Crane Press, Ind. Florida, USA.
Worthington, Brian E. (2008). An Osteometric Analysis of Southeastern Prehistoric Domestic Dogs. MA Thesis. Department of Anthropology, Florida State University, USA.
Zeder, Melinda A. (1983). Report on the Animal Bones from San Lorenzo, Ecuador. Manuscrito. Departamento de Antropología, Smithsonian Institution.
Anexo Tablas
El Francés, Samaná, Dominicana
Fauna Vertebrada e Invertebrada
Lista por corte y unidad. Tabla 1.
Corte 8 Unidad 2 nivel 1 (Ciguoide y Protochicoide)
| Taxones Vertebrados | NISP | NMI | % | Peso Gms. |
|---|---|---|---|---|
| Reptiles No Identificados | 1 | 0 | 0 | 1.04 |
| Lachnolaimus maximus | 1 | 1 | 100 | 7.52 |
| TOTALES | 2 | 1 | 100 | 8.56 |
Corte 8 Unidad 3 Nivel 2 (Cuevas y Ciguoide)
| Taxones Vertebrados | NISP | NMI | % | Peso Gms. |
|---|---|---|---|---|
| Trachemys stejnegeri vicina | 2 | 1 | 25 | 5 |
| Cheloniidae | 3 | 0 | 0 | 4.88 |
| Cyclura cornuta | 1 | 1 | 25 | 2.01 |
| Pescados No Identificados | 7 | 0 | 0 | 28.85 |
| Scarus spp. | 1 | 0 | 0 | 0.91 |
| Balistes vetula | 2 | 2 | 50 | 3.25 |
| TOTALES | 16 | 4 | 100 | 44.9 |
Corte 8 Unidad 5 Nivel 2 (Cuevas y Ciguoide)
| Taxones Vertebrados | NISP | NMI | % | Peso Gms. |
|---|---|---|---|---|
| Trachemys stejnegeri vicina | 1 | 1 | 50 | 1.5 |
| Cheloniidae | 1 | 0 | 0 | 10.14 |
| Cyclura cornuta | 1 | 1 | 50 | 2.1 |
| Pescados No Identificados | 5 | 0 | 0 | 8.39 |
| TOTALES | 8 | 2 | 100 | 22.13 |
El Francés, Samaná, Dominicana
Fauna Vertebrada e Invertebrada
Lista por corte y unidad. Tabla 1.
Corte 10 Unidad 1 sección 1 (Ciguoide y protochicoide)
| Taxones Vertebrados | NISP | NMI | % | Peso Gms. |
|---|---|---|---|---|
| Trichechus manatus | 1 | 1 | 14.28 | 251.84 |
| Isolobodon portoricensis | 2 | 1 | 14.28 | 2.66 |
| Aves No Identificadas | 1 | 0 | 0 | 1.39 |
| Trachemys stejnegeri vicina | 2 | 2 | 28.57 | 12.04 |
| Cheloniidae | 15 | 0 | 0 | 83.47 |
| Cyclura cornuta | 7 | 2 | 28.57 | 30.7 |
| Pescados No Identificados | 22 | 0 | 0 | 47.92 |
| Euthynnus spp. | 1 | 0 | 0 | 0.6 |
| Scomberomus spp. | 5 | 0 | 0 | 22.82 |
| Balistes vetula | 1 | 1 | 14.28 | 3.05 |
| Huesos No Identificados | 2 | 0 | 0 | 4.7 |
| TOTALES | 59 | 7 | 99.98 | 461.19 |
Corte 10 Unidad 2 Nivel 2 (Cuevas y Ciguoide)
| Taxones Vertebrados | NISP | NMI | % | Peso Gms. |
|---|---|---|---|---|
| Cetacea | 1 | 0 | 0 | 555.04 |
| Trichechus manatus | 2 | 1 | 8.33 | 277.93 |
| Isolobodon portoricensis | 5 | 2 | 16.66 | 15.06 |
| Pelecanus occidentalis | 1 | 1 | 8.33 | 2.63 |
| Cheloniidae | 18 | 0 | 0 | 313.26 |
| Cyclura cornuta | 3 | 1 | 8.33 | 9.19 |
| Pescados No Identificados | 9 | 0 | 0 | 16.01 |
| Caranx hippos | 5 | 2 | 16.66 | 42.75 |
| Scarus spp. | 1 | 0 | 0 | 8.03 |
| Sparisoma viride | 1 | 1 | 8.33 | 1.26 |
| Euthynnus spp. | 1 | 0 | 0 | 0.72 |
| Scomberomous spp. | 1 | 0 | 0 | 5.11 |
| Balistes vetula | 1 | 1 | 8.33 | 3.68 |
| Diodon hystrix | 1 | 1 | 8.33 | 14.13 |
| INVERTEBRADOS CRUSTACEOS | ||||
| Cardisoma guanhumi | 4 | 2 | 16.66 | 16.78 |
| TOTALES | 54 | 12 | 99.96 | 1281.58 |
El Francés, Samaná, Dominicana
Fauna Vertebrada e Invertebrada
Lista por corte y unidad. Tabla 1.
Corte 11 Unidad 0 (Nivel Superficie revuelto.)
| Taxones Vertebrados | NISP | NMI | % | Peso Gms. |
|---|---|---|---|---|
| Trichechus manatus | 1 | 1 | 2.7 | 14.52 |
| Isolobodon portoricensis | 4 | 2 | 5.4 | 12.31 |
| Queloniidae | 54 | 0 | 0 | 153.68 |
| Cyclura cornuta | 8 | 2 | 5.4 | 12.03 |
| Aves No Identificadas | 1 | 0 | 0 | 0.6 |
| Pescados No Identificados | 79 | 0 | 0 | 111.62 |
| Carcharhinidae | 1 | 0 | 0 | 0.83 |
| Centropomus undecimalis | 18 | 3 | 8.1 | 32.49 |
| Epinephelus guttatus | 4 | 1 | 2.7 | 13.13 |
| Mycteroperca tigris | 1 | 1 | 2.7 | 1.82 |
| Caranx hippos | 11 | 5 | 13.51 | 52.33 |
| Lutjanus apodus | 4 | 2 | 5.4 | 5.98 |
| Halichoeres readiatus | 3 | 3 | 8.1 | 7.64 |
| Lachnolaimus maximus | 1 | 1 | 2.7 | 4.56 |
| Scarus guacamaia | 1 | 1 | 2.7 | 2.98 |
| Sparisoma viride | 7 | 5 | 13.51 | 10.22 |
| Euthynnus spp. | 9 | 0 | 0 | 6.44 |
| Balistes vetula | 10 | 6 | 16.21 | 17.37 |
| INVERTEBRADOS CRUSTACEOS | ||||
| Cardisoma guanhumi | 16 | 4 | 10.81 | 32.96 |
| TOTALES | 233 | 37 | 99.94 | 493.51 |
Corte 11 Unidad 1 (Nivel Superficie revuelto.)
| Taxones Vertebrados | NISP | NMI | % | Peso Gms. |
|---|---|---|---|---|
| Isolobodon portoricensis | 1 | 1 | 2.08 | 2.18 |
| Trachemys stejnegeri vicina | 8 | 1 | 2.08 | 16.01 |
| Aves No Identificadas | 3 | 0 | 0 | 7.73 |
| Cheloniidae | 53 | 0 | 0 | 234.42 |
| Cyclura cornuta | 8 | 1 | 2.08 | 14.22 |
| Pescados No Identificados | 155 | 0 | 0 | 243.43 |
| Carcharhinidae | 1 | 0 | 0 | 0.58 |
| Centropomus undecimalis | 26 | 5 | 10.41 | 48.86 |
| Epinephelus spp. | 3 | 0 | 0 | 5.26 |
El Francés, Samaná, Dominicana
Fauna Vertebrada e Invertebrada
Lista por corte y unidad. Tabla 1.
Corte 12 Unidad 1 (Nivel superficie revuelto).
| Taxones Vertebrados | NISP | NMI | % | Peso Gms. |
|---|---|---|---|---|
| Trichechus manatus | 3 | 1 | 4.76 | 30.69 |
| Canis familiaris | 3 | 2 | 9.52 | 9.56 |
| Isolobodon portoricensis | 5 | 2 | 9.52 | 5.88 |
| Aves No Identificadas | 1 | 0 | 0 | 1.22 |
| Patagioenas spp. | 1 | 0 | 0 | 0.52 |
| Cheloniidae | 6 | 0 | 0 | 58.73 |
| Cyclura cornuta | 5 | 1 | 4.76 | 11.87 |
| Pescados No Identificados | 45 | 0 | 0 | 118.37 |
| Carcharhinidae | 1 | 0 | 0 | 1.27 |
| Centropomus undecimalis | 20 | 3 | 14.28 | 49.95 |
| Epinephelus spp. | 1 | 0 | 0 | 2.27 |
| Caranx hyppos | 1 | 1 | 4.76 | 6.32 |
| Lachnolaimus maximus | 1 | 1 | 4.76 | 27.92 |
| Scarus guacamaia | 3 | 3 | 14.28 | 8.17 |
| Sphyraena barracuda | 2 | 2 | 9.52 | 2.96 |
| Diodon hystrix | 3 | 3 | 14.28 | 37.4 |
| INVERTEBRADOS CRUSTACEOS | ||||
| Cardisoma guanhumi | 2 | 2 | 9.52 | 8.23 |
| TOTALES | 103 | 21 | 99.96 | 381.33 |
Corte 12 Unidad 2 (Nivel superficie revuelto.)
| Taxones Vertebrados | NISP | NMI | % | Peso Gms. |
|---|---|---|---|---|
| Isolobodon portoricensis | 6 | 3 | 15.78 | 12.65 |
| Trachemys stejnegeri vicina | 2 | 1 | 5.26 | 8.18 |
| Cheloniidae | 4 | 0 | 0 | 18.24 |
| Cyclura cornuta | 5 | 1 | 5.26 | 11.57 |
| Pescados No Identificados | 23 | 0 | 0 | 57.84 |
| Centropomus undecimalis | 10 | 3 | 15.78 | 47.54 |
| Caranx hippos | 3 | 2 | 10.52 | 7.4 |
| Scarus guacamaia | 2 | 2 | 10.52 | 10.15 |
| Sparisoma viride | 2 | 2 | 10.52 | 2.7 |
| Sphyraena barracuda | 2 | 1 | 5.26 | 6.03 |
| Euthynnus spp. | 3 | 0 | 0 | 6.49 |
| Balistes vetula | 2 | 2 | 10.52 | 3.29 |
| Diodon hyxtrix | 2 | 2 | 10.52 | 50.51 |
El Francés, Samaná, Dominicana
Fauna Vertebrada e Invertebrada
Lista por corte y unidad. Tabla 1.
Corte 13 Unidad 1 (Nivel superficie revuelto.)
| Taxones Vertebrados | NISP | NMI | % | Peso Gms. |
|---|---|---|---|---|
| Cheloniidae | 3 | 0 | 0 | 35.16 |
| Cyclura cornuta | 1 | 1 | 14.28 | 2.3 |
| Centropomus undecimalis | 5 | 2 | 28.57 | 22.26 |
| Epinephelus spp. | 1 | 0 | 0 | 6.68 |
| Mycteroperca tigris | 1 | 1 | 14.28 | 6.83 |
| INVERTEBRADOS CRUSTACEOS | ||||
| Cardisoma guanhumi | 4 | 3 | 42.85 | 11.15 |
| TOTALES | 15 | 7 | 99.98 | 84.38 |
Corte 13 Unidad 2 (Nivel superficie revuelto.)
| Taxones Vertebrados | NISP | NMI | % | Peso Gms. |
|---|---|---|---|---|
| Trichechus manatus | 1 | 1 | 20 | 74.76 |
| Cheloniidae | 4 | 0 | 0 | 32.62 |
| Cyclura cornuta | 1 | 1 | 20 | 3.3 |
| Centropomus undecimalis | 3 | 2 | 40 | 4.91 |
| Sparisoma viride | 1 | 1 | 20 | 0.57 |
| TOTALES | 10 | 5 | 100 | 116.16 |
Corte 13 Unidad 3 (Nivel superficie revuelto.)
| Taxones Vertebrados | NISP | NMI | % | Peso Gms. |
|---|---|---|---|---|
| Mamiferos No Identificados | 1 | 0 | 0 | 0.35 |
| Trichechus manatus | 1 | 1 | 8.33 | 69.06 |
| Aves No Identificadas | 1 | 0 | 0 | 3.13 |
| Cheloniidae | 26 | 0 | 0 | 373.88 |
| Cyclura cornuta | 8 | 1 | 8.33 | 10.94 |
| Pescados No Identificados | 9 | 0 | 0 | 33.31 |
| Centropomus undecimalis | 2 | 2 | 16.66 | 8.5 |
| Caranx hippos | 4 | 2 | 16.66 | 31.98 |
| Scarus guacamaia | 1 | 1 | 8.33 | 7.53 |
| Euthynnus spp. | 1 | 0 | 0 | 0.64 |
El Francés, Samaná, Dominicana
Fauna Vertebrada e Invertebrada
Lista general de especies y nombres comunes. Tabla 2.
VERTEBRADOS
| Taxones | NISP | NMI | % | Peso Gms. |
|---|---|---|---|---|
| Mamiferos No Identificados | 1 | 0 | 0 | 0.35 |
| Canis familiaris (Perro doméstico) | 3 | 2 | 0.47 | 9.56 |
| Cetacea (Ballenas, delfines y marsopas) | 1 | 0 | 0 | 555.04 |
| Trichechus manatus (Manatí) | 17 | 11 | 2.61 | 1331.54 |
| Isolobodon portoricensis (Hutía) | 72 | 38 | 9.01 | 158.04 |
| Aves No Identificadas | 33 | 0 | 0 | 37.03 |
| Sula leucogaster (Boba) | 1 | 1 | 0.23 | 2.19 |
| Pelecanus occidentalis (PelIcano pardo) | 1 | 1 | 0.23 | 2.63 |
| Ardeidae (Garzas, Yaboas Y Martinetes) | 2 | 0 | 0 | 2.45 |
| Anas spp. (Patos) | 1 | 0 | 0 | 0.69 |
| Patagioenas inornata (Paloma sabanera) | 1 | 1 | 0.23 | 0.74 |
| Patagioenas spp. (Palomas) | 3 | 0 | 0 | 2.08 |
| Reptiles No Identificados | 1 | 0 | 0 | 1.04 |
| Trachemys stejnegeri vicina (Hicotea; Tortuga de tierra) | 41 | 14 | 3.32 | 214.68 |
| Cheloniidae (Tortugas marinas) | 740 | 0 | 0 | 8673.22 |
| Eretmochelys imbricata (Carey) | 1 | 1 | 0.23 | 3.46 |
| Cyclura cornuta (Iguana) | 451 | 75 | 17.77 | 946.07 |
| Pescados No Identificados | 1094 | 0 | 0 | 1674.08 |
| Carcharhinidae (Tiburones) | 3 | 0 | 0 | 2.68 |
| Tylosurus spp. (Agujones) | 6 | 2 | 0.47 | 4.8 |
El Francés, Samaná, Dominicana
Fauna Vertebrada e Invertebrada
Resumen de los Hábitats Utilizados. Tabla 3.
| HABITAT | NMI | % |
|---|---|---|
| Terrestre | 215 | 40.48 |
| Agua Dulce | 24 | 4.51 |
| Playa | 2 | 0.37 |
| Litoral – Estuario | 27 | 5.08 |
| Bancos y Arrecifes | 117 | 22.03 |
| Pelágico | 4 | 0.75 |
| Múltiple | 142 | 26.74 |
| TOTALES | 531 | 99.96 |
Modificaciones Oseas Vertebrados e Invertebrados Crustáceos. Tabla 4
| TAXONES | Instrumentos | Adornos | Cortes | Fuego | Dientes |
|---|---|---|---|---|---|
| Vertebrados | |||||
| Trichechus manatus | 5 | 1 | |||
| Trachemys stejnegeri vicina | 3 | ||||
| Cheloniidae | 5 | 2 | 14 | ||
| Eretmochelys imbricata | 1 | ||||
| Pescados No Identificados | 5 | ||||
| Carcharhinidae | 2 | ||||
| Centropomus undecimalis | 8 | ||||
| Lutjanus spp. | 1 | ||||
| Sparisoma viride | 1 | ||||
| Euthynnus spp. | 2 | ||||
| Huesos No Identificados | 1 | 1 | |||
| Invertebrados Crustáceos | |||||
| Cardisoma guanhumi | 16 | ||||
| TOTALES | 14 | 2 | 3 | 48 | 1
|
El Francés, Samaná, Dominicana
Lista General de Especies. Niveles Culturales. Tabla 5.
Nivel 1 — Ciguoide y protochicoide
(Cortes 8, 10, 11 y 12).
| Taxones Vertebrados | NISP | NMI | % | Peso Gms. |
|---|---|---|---|---|
| Trichechus manatus | 2 | 2 | 3.77 | 529.87 |
| Isolobodon portoricensis | 7 | 4 | 7.54 | 15.97 |
| Aves No Identificadas | 8 | 0 | 0 | 12.67 |
| Patagioenas spp. | 1 | 0 | 0 | 0.55 |
| Reptiles No Identificados | 1 | 0 | 0 | 1.04 |
| Trachemys stejnegeri vicina | 9 | 5 | 9.43 | 82.65 |
| Cheloniidae | 42 | 0 | 0 | 167.32 |
| Cyclura cornuta | 32 | 8 | 15.09 | 83.39 |
| Pescados No Identificados | 105 | 0 | 0 | 147.06 |
| Centropomus undecimalis | 15 | 4 | 7.54 | 35.46 |
| Epinephelus guttatus | 6 | 4 | 7.54 | 18.15 |
| Caranx hippos | 5 | 3 | 5.66 | 29.42 |
| Lutjanus analis | 2 | 1 | 1.88 | 7.29 |
| Lutjanus griseus | 1 | 1 | 1.88 | 0.66 |
| Sparisoma viride | 1 | 1 | 1.88 | 1.53 |
| Scarus guacamaia | 1 | 1 | 1.88 | 8.05 |
| Euthynnus spp. | 20 | 0 | 0 | 15.71 |
| Lachnolaimus maximus | 1 | 1 | 1.88 | 7.52 |
| Balistes vetula | 9 | 4 | 7.54 | 14.82 |
| Scomberomus spp. | 5 | 0 | 0 | 22.82 |
| Diodon hystrix | 3 | 1 | 1.88 | 25.62 |
| Huesos No Identificados | 3 | 0 | 0 | 6.91 |
| TAXONES INVERTEBRAROS | ||||
| Cardisoma guanhumi | 51 | 13 | 24.52 | 122.81 |
| TOTALES | 330 | 53 | 99.91 | 1357.29 |